过量摄入游离糖会显著增加代谢疾病风险,世界卫生组织建议限制其摄入量[1]。鉴于人工合成甜味剂存在潜在安全性争议[2],筛选并开发来源天然、风味优良且健康的非营养性甜味剂,已成为食品工业实现减糖转型的研究热点[3]。甜菊糖苷(steviol glycosides,SGs)为甜叶菊(Stevia rebaudiana)的天然提取物,是最早获得工业关注和消费者信任的甜味剂之一,具有远高于蔗糖的甜度(约为蔗糖的200~300 倍),并具有抗癌[4]、抗糖尿病[5]、降低心血管疾病的风险[6]等多种健康效应,广泛应用于食品与饮料市场[7]。目前已鉴定的SGs成分超过60 种,但受提取率和感官等因素限制,仅少数品种实现了工业应用。在众多成分中,甜菊苷(stevioside,STV)和瑞鲍迪苷A(rebaudioside A,Reb A)因其含量高而较早受到关注,而瑞鲍迪苷M(rebaudioside M,Reb M)则因其较短的回味及更接近蔗糖甜感的理想感官属性近年来备受重视[8]。
在溶液体系中,SGs的感官特性与其分子结构密切相关,且主要受分子中糖基数量及连接位置的影响[9]。SGs是一类以四环甜菊醇为骨架的二萜糖苷(图1),其结构特征为C13位叔羟基与C19位羧基处连接不同数量与类型的糖基[10]。已有研究表明,在C19位糖基数目不变的条件下,增加C13位糖基数通常可增强甜感并显著降低苦味;而C19位糖基数目较少则更易与苦味受体结合,导致苦味增强并延长后味[11]。表1汇总了本研究3 种SGs的结构及其相对甜度信息。STV、Reb A在C19位均具有1 个葡萄糖基,Reb A在C13位比STV多1 个葡萄糖基。Reb M在C13位取代基与Reb A相同,但C19位上的葡萄糖基数比Reb A多两个。
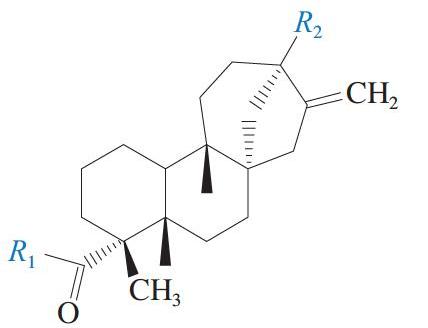
图1 SGs分子结构通式
Fig. 1 General structure formula of SGs
表1 3 种主要SGs的结构及其相对甜度
Table 1 Structures and relative sweetness of three major SGs
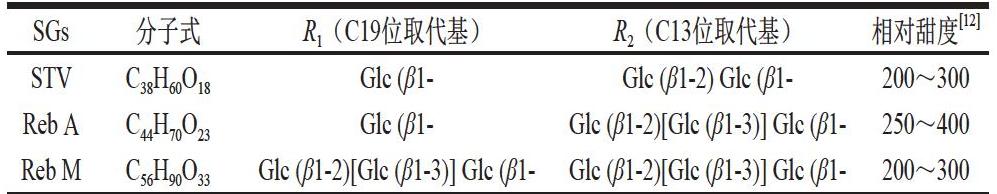
STVC38 H60 O18 Glc (β1-Glc (β1-2) Glc (β1-200~300 SGs分子式R1(C19位取代基)R2(C13位取代基)相对甜度[12]Reb AC44H70O23Glc (β1-Glc (β1-2)[Glc (β1-3)] Glc (β1-250~400 Reb MC56H90O33Glc (β1-2)[Glc (β1-3)] Glc (β1-Glc (β1-2)[Glc (β1-3)] Glc (β1-200~300
大豆蛋白主要由水溶性白蛋白和盐溶性球蛋白构成,其中大豆球蛋白(11S)和β-伴大豆球蛋白(7S)是球蛋白的主要成分,分别约占大豆球蛋白总量的35%与31%~52%[13]。由于11S和7S在大豆总蛋白中占据绝对主导地位(>70%),且是决定植物基食品基质物理特征与感官轮廓的核心组分,因此本研究聚焦于这两类球蛋白,以解析其与SGs的相互作用规律。11S分子质量约为360 kDa,由AB肽链构成,6 个AB肽链形成一个圆饼状六聚体[14]。11S分子内和分子间有较多的二硫键,这使其空间结构的刚性和疏水性较强。7S的分子质量约为180~210 kDa,由α、α′和β亚基通过疏水作用形成三聚体糖蛋白,三段亚基分子质量可形成7 种组合形式(如αα′β、βββ等)。7S 3 个亚基均含有糖基,这使其具有显著的柔性结构和强亲水能力[15]。
SGs的应用主要受限于其固有的不良后味,如持久的苦味、金属味及涩味等,这些不良风味的产生主要源于其独特的分子结构特征,SGs具有共同的疏水性二萜骨架(甜菊醇),虽然糖基的种类和数量决定了其甜度,但该骨架结构及特定的糖基化模式使其在激活甜味受体(TAS1R2/TAS1R3)的同时,能够交叉激活口腔中的苦味受体(尤其是TAS2R4和TAS2R14)[16]。值得注意的是,在实际食品体系中,SGs通常并非以“游离分子”的形式存在,而是不可避免地与体系中的大分子组分(如蛋白质)发生相互作用,其在体系中的赋存状态、空间分布及有效感知浓度均可能发生改变。因此,近年来相关研究逐渐从单一分子感官机制,拓展到SGs与大分子物质相互作用行为的探索。例如,有研究报道Reb A可与牛血清白蛋白形成复合物并引起呈味变化,且感官属性的变化可能源于SGs在牛血清白蛋白溶液体系中的分布形态与其在纯溶液中的存在状态不同,进而影响其味觉受体的可达性与感知效率[17]。此外,多项研究表明,SGs可通过糖基介导的氢键缔合与疏水相互作用与大豆蛋白形成复合体,引发蛋白质构象松弛与部分解折叠[18],且该结合具有浓度依赖性和pH值依赖性特征[19]。大豆蛋白作为植物基食品中最主要、最具代表性的结构蛋白,其不同球蛋白组分在分子质量、亚基组成及结构柔性方面存在显著差异[20-22]。然而,目前尚不清楚不同分子结构的SGs与大豆蛋白组分结合行为的特征,以及这种分子层面的相互作用差异是否会对宏观感官感知层面产生影响。
基于上述背景,本研究探究SGs与大豆蛋白组分之间的相互作用规律,重点关注不同结构SGs与大豆蛋白主要组分的结合行为,明确大豆蛋白组分与SGs结合后对甜味及苦涩味等感官属性是否有影响,并尝试探究大豆蛋白对SGs感官属性的调控规律。本研究选取结构与甜味特征具有代表性的3 种SGs(Reb A、STV、Reb M)与大豆蛋白的两种核心球蛋白组分(11S和7S),系统比较不同SGs-大豆蛋白组合的结合行为差异。通过定量分析其与大豆蛋白主要组分(11S、7S)的结合量,综合运用内源色氨酸荧光、圆二色光谱(circular dichroism,CD)与傅里叶变换红外光谱(Fourier transform infrared spectroscopy,FTIR)等手段解析其相互作用机制,并在此基础上引入静态感官描述分析方法评估复合物对感官属性的具体影响。旨在从分子水平揭示植物蛋白与天然高倍甜味剂的结合机理及其对风味特征的调控,并为植物基食品体系中SGs的应用及风味调控提供理论依据。
1 材料与方法
1.1 材料与试剂
大豆豆粕购于山东御馨生物科技股份有限公司;Reb A(纯度>9%)、STV(纯度>95%) 山东海根生物技术有限公司;Reb M(纯度>95%) 山东圣香远生物科技有限公司;白砂糖 广州福正东海食品有限公司;莲子心 北京同仁堂股份有限公司;雀巢纯品咖啡粉 雀巢(中国)有限公司;感官评价所用纯净水购于屈臣氏集团有限公司。
单宁酸、阿斯巴甜、薄荷香精 河南万邦化工科技有限公司;乙腈、磷酸、磷酸二氢钠 上海阿拉丁生化科技股份有限公司;所有化学品均为分析纯,实验用水为去离子水。
1.2 仪器与设备
DELTA 1-24 LSC冷冻干燥机 德国Christ公司;K9840凯氏定氮仪 济南海能仪器股份有限公司;Nicolet IS50 FTIR仪 美国Thermo Fisher Scientific公司;Chirascan J-810型CD仪 英国Applied Photophysis公司;1260 Infinity II高效液相色谱(high performance liquid chromatography,HPLC)仪 美国Agilent公司;CR 22 G II 高速低温离心机、F-7000荧光分光光度计 日本Hitachi公司;Q-Sense E1石英晶体微天平 瑞典Biolin Scientific公司。
1.3 方法
1.3.1 大豆蛋白11S和7S的分离制备
大豆7S和11S组分的分离基于Guo Jian等[23]的方法并作出相应修改。将粉碎的低温脱脂豆粕加入去离子水混匀搅拌(料液比1∶15(g/mL)),加入2 mol/L NaOH溶液调节pH值至7.5,室温低速搅拌2 h后,于20 ℃条件下以8 000 r/min离心30 min。上清液中缓慢添加亚硫酸氢钠(0.98 g/L),静置30 min以断裂蛋白二硫键,以2 mol/L HCl溶液调节pH值至6.4,随后将混合液于4 ℃静置16 h。静置完成后,以6 500×g(4 ℃)离心20 min,收集沉淀得11S球蛋白。上清液缓慢加入NaCl粉末搅拌溶解至NaCl溶液终质量浓度为11.69 g/L,调节pH值至5.0后在4 ℃静置1 h,并于4 ℃、9 000×g离心30 min去除沉淀。上清液加入等体积预冷去离子水(4 ℃),调节pH值至4.8后以6 500×g(4 ℃)离心20 min,所得沉淀为7S组分。11S和7S沉淀经去离子水洗涤两次后,按质量比1∶10复溶于去离子水,以2 mol/L NaOH溶液调节pH值至7.5充分溶解,4 ℃条件下透析48 h脱盐,冷冻干燥后保存于干燥箱中。11S和7S最终蛋白质量分数经凯氏定氮法测定分别为(94.67±0.83)%和(91.35±0.71)%。色谱柱:J&W DB-5石英毛细柱(30 m×0.25 mm,0.25 µm);升温程序:180 ℃保持1 min,以20 ℃/min升至280 ℃,保持4 min;载气(He)流速1.2 mL/min,压力2.4 kPa,进样量0.5 µL;分流比10∶1。
1.3.2 SGs和大豆蛋白复合溶液的制备
准确称取11S、7S与SGs样品,分别溶解于10 mmol/L 磷酸盐缓冲液(phosphate buffered saline,PBS)(pH 7.0)。11S、7S于25 ℃条件下缓慢搅拌2 h。随后转移至4 ℃静置过夜以充分水合,离心(8 000 r/min,20 min)后在80 ℃加热20 min。SGs在90 ℃加热30 min,确保充分溶解。将pH值调节至7.0的11S和7S溶液与SGs溶液按比例混合配制11S-SGs、7S-SGs复合体系,其中11S、7S固定为离心后0.1%(质量分数,后同),SGs质量分数梯度为0.05%~0.5%。混合液于25 ℃温和搅拌30 min,确保分子间相互作用充分进行。
1.3.3 HPLC测定与大豆蛋白组分结合的SGs浓度
参考Tenney等[24]的方法分离大豆蛋白-SGs复合物与大豆蛋白组分结合的SGs,使用Sigma Millipore Amicon Ultra-15超滤管,截留分子质量为3 kDa,以5 000 r/min离心30 min。收集滤液,过0.22 μm滤膜,所得滤液即大豆蛋白与SGs复合物的提纯液。
随后通过HPLC测量滤液中SGs的含量,参考GB 1886.355—2022《食品添加剂 甜菊糖苷》的方法,使用配备C18反相色谱柱(250 mm×4.6 mm,5 µm)的液相色谱仪。称量1.20 g磷酸二氢钠溶解于1 L去离子水,以磷酸溶液调节pH值至2.6,制备10 mmol/L磷酸钠缓冲液。流动相为乙腈与磷酸钠缓冲液(32∶68,V/V),流速控制为0.8 mL/min,检测波长210 nm,柱温恒定40 ℃,进样体积10 μL。所有测试数据基于3 次平行实验取平均值。
1.3.4 SGs与大豆蛋白组分的结合量和结合比例测定
参考Tenney等[24]的方法并做适当修改,以评估3 种SGs与蛋白质的结合量和结合比例差异。结合量和结合比例分别按式(1)、(2)计算:

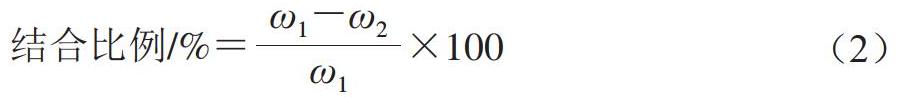
式中:ω1为体系中添加的SGs质量分数/%;ω2为滤液中SGs的质量分数/%。
1.3.5 内源色氨酸荧光光谱测定
通过内源色氨酸荧光光谱法探究SGs对11S、7S分子内色氨酸微环境的影响,揭示其相互作用机制。使用F-7000荧光分光光度计测定11S(质量分数0.1%)与不同质量分数SGs(0%~0.5%)在10 mmol/L PBS(pH 7.0)中的荧光光谱,以同浓度SGs溶液为空白校正。设定激发波长295 nm,发射波长扫描范围310~500 nm,激发与发射狭缝宽度均为5 nm,测试温度为25 ℃。
色氨酸的荧光猝灭采用Stern-Volmer方程分析,以F0/F对猝灭剂浓度[Q]作图,通过式(3)计算荧光猝灭速率常数:
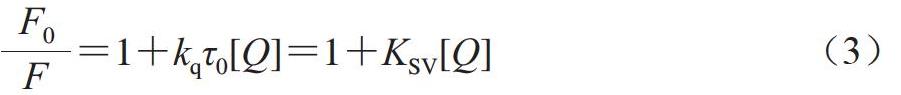
式中:F0与F分别为猝灭剂(SGs)加入前后蛋白质荧光发射峰的强度;[Q]为猝灭剂浓度/(mmol/L);KSV为Stern-Volmer猝灭常数;kq为双分子猝灭过程的速率常数;τ0为猝灭剂不存在时荧光分子的平均寿命(生物大分子τ0约为10-8 s)。
1.3.6 CD测定
通过CD技术表征11S、7S及其SGs复合物的二级结构变化。实验体系为pH 7.0的10 mmol/L PBS,大豆蛋白质量分数为0.01%,SGs与11S/7S的质量比为10∶1和50∶1。采用Chirascan J-810型CD仪在25 ℃、氮气保护条件下进行测试,使用光程1 mm的专用石英比色皿,远紫外区扫描范围为190~260 nm。参数设定为连续扫描速率 300 nm/min,数据间隔1 nm,带宽1 nm,灵敏度为100 mdeg。每组数据累计采集3 次并取均值,分析数据时从最终结果中减去SGs溶液和PBS的背景光谱。原始数据经Dichroweb平台(http://dichroweb.cryst.bbk.ac.uk)解析,选择CONTINN算法及参考集4(Reference Set 4,包含43 种已知结构的球形蛋白质库)计算α-螺旋、β-折叠、β-转角和无规卷曲的相对含量。
1.3.7 FTIR测定
采用FTIR技术表征11S和7S及其与SGs复合物的分子结构特征,复合物的蛋白质量分数为0.1%、SGs质量分数为0.5%。所有样品经DELTA 1-24 LSC冷冻干燥机脱水后研磨成粉末,按质量比1∶10与溴化钾(KBr)均匀混合,随后压制成透明薄片。使用Nicolet IS50傅里叶变换红外光谱仪在25 ℃条件下进行检测,光谱扫描范围覆盖4 500~500 cm-1,设定分辨率为1 cm-1。通过分析不同官能团的红外吸收峰位移及强度变化,解析结合前后11S和7S的构象差异。
1.3.8 建模和分子对接
分子对接可以用于检验分子之间的结合活性,采用半柔性对接程序AutoDock Tools-1.5.6进行分子对接。11S和7S球蛋白的晶体结构从RCSB数据库(https://www.rcsb.org/)获取,其ID分别为IOD5和3AUP。从Pubchem数据库(https://pubchem.ncbi.nlm.nih.gov/)下载3 种SGs小分子的结构。将小分子化合物导入AutoDock软件并添加原子电荷、分配原子类型,所有柔性键设置为可旋转的模式,并构建蛋白体结构的对接网格盒。对分子对接结果进行分析,化合物与蛋白的结合作用可视化采用PyMOL 2.1软件。在计算过程中,使用Lamarckian遗传算法进行计算。
1.3.9 静态感官特征
1.3.9.1 评价人员的筛选和培训
依据ISO 8586: 2023和GB/T 16291.1—2012《感官分析 选拔、培训与管理评价员一般导则 第1部分:优选评价员》,本研究从学校征集了50 名健康学生参与系统化筛选,通过评估构建甜味剂感官评价小组。评估涵盖健康状态审查(无味嗅觉障碍及过敏史、饮食偏好)、基础感官能力测试(5 类基本味觉识别、典型气味辨识、甜苦味浓度梯度差异辨别)、味觉匹配验证和24 h感官重复性。最终选拔了综合评分≥85 分的12 名评价人员,包括8 名女性和4 名男性,年龄范围在20~30 岁。
评价员需参与为期12 周的标准化校准训练,每周固定频率,聚焦基于ISO 8586: 2023标准的口腔感知属性辨识及强度分级技能,强化对感官特征的精准描述能力。通过多轮样本对比测试及定量感官强度评估,确保成员间评价基准统一。每轮训练后动态优化评估标准,直至所有成员达成一致的感官比较模式。
1.3.9.2 样品品评流程
实验在恒温25 ℃的标准化感官实验室中进行,每位评价人员配备独立隔间。参评人员需严格遵守测试前1 h禁食(仅允许饮水)的规定,并佩戴鼻夹以消除嗅觉干扰。样品分装于30 mL透明塑料杯中,不同样品以随机 3 位数进行编码,单次测试提供10 mL试液,要求评价员含漱5 s后吐出,分别记录各评价指标感受。每轮测试间隔需以纯净水漱口并咀嚼无味苏打饼干(1~2 片)清洁口腔,静息30 s以消除感官残留。每个样品间隔3 min以上,所有样品均需完成3 次独立重复测试。
1.3.9.3 感官评价指标的确定
参考田欣雨[25]的方法以及关于甜味剂感官属性的术语库,筛选了15 个感官指标进行初步品评。将感官指标及其定义提供给参评人员,参评人员通过预尝测试熟悉Reb A、STV、Reb M样品的感官特征,整合初筛术语库后,经小组讨论剔除主观偏好性、冗余样本及样本区分度低的描述属性,最终保留成员共识度≥80%的核心术语用于后续分析。最终筛选了10 个静态描述性指标,各指标的定义及参照样品如表2所示。
表2 SGs的感官属性定义及参照样品
Table 2 Definition of sensory attributes and reference samples for SGs
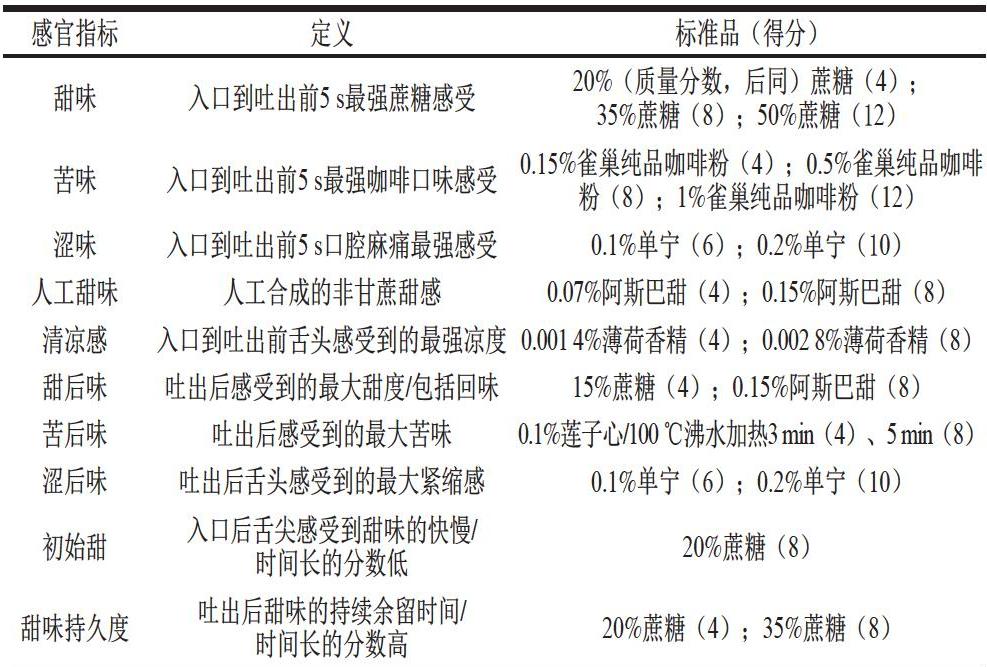
感官指标定义标准品(得分)甜味入口到吐出前5 s最强蔗糖感受20%(质量分数,后同)蔗糖(4);35%蔗糖(8);50%蔗糖(12)苦味入口到吐出前5 s最强咖啡口味感受0.15%雀巢纯品咖啡粉(4);0.5%雀巢纯品咖啡粉(8);1%雀巢纯品咖啡粉(12)涩味入口到吐出前5 s口腔麻痛最强感受0.1%单宁(6);0.2%单宁(10)人工甜味人工合成的非甘蔗甜感0.07%阿斯巴甜(4);0.15%阿斯巴甜(8)清凉感入口到吐出前舌头感受到的最强凉度0.001 4%薄荷香精(4);0.002 8%薄荷香精(8)甜后味吐出后感受到的最大甜度/包括回味15%蔗糖(4);0.15%阿斯巴甜(8)苦后味吐出后感受到的最大苦味0.1%莲子心/100 ℃沸水加热3 min(4)、5 min(8)涩后味吐出后舌头感受到的最大紧缩感0.1%单宁(6);0.2%单宁(10)初始甜入口后舌尖感受到甜味的快慢/时间长的分数低20%蔗糖(8)甜味持久度吐出后甜味的持续余留时间/时间长的分数高20%蔗糖(4);35%蔗糖(8)
1.4 数据分析
除特别说明外,使用SPSS 27.0.1软件对数据进行统计分析。实验结果以 表示,通过单因素方差分析(One-way ANOVA)评估组间差异,并采用Duncan’s多重比较检验进行样本间的显著性分析(P<0.05表示差异显著)。所有实验数据图表均利用Origin 2022软件进行绘制。
2 结果与分析
2.1 SGs与大豆蛋白组分的结合特性
本研究采用超滤法分离游离与结合态SGs,定量分析了不同质量分数(0.05%~0.5%)的3 种SGs与大豆蛋白组分(11S和7S,0.1%)的结合特性(图2)。结果表明,SGs与大豆蛋白的结合行为呈现显著的结构特异性与浓度依赖性。在结合量方面,Reb M对两种蛋白组分的亲和力优于Reb A和STV。当SGs质量分数为0.5%时,Reb M与11S的结合量分别较Reb A和STV高出22.78%和74.15%,其与7S的结合量则较Reb A和STV分别高出38.98%和112.11%。在结合比例方面,Reb M在0.3%~0.5%范围时结合比例也高于Reb A和STV,这主要归因于Reb M具有最多的葡萄糖基侧链(图1、表1),更多的糖基团赋予了Reb M更强的极性,显著增强了其与蛋白表面极性残基间的氢键相互作用网络[19,26]。三者相较之下,糖基数最少的STV与11S和7S的结合量最低,即使在高质量分数时(0.5%)STV与11S和7S的结合量也分别仅有0.054 8%、0.037 1%,这表明糖基数量较少的SGs与亲水性蛋白表面的结合驱动力相对不足。
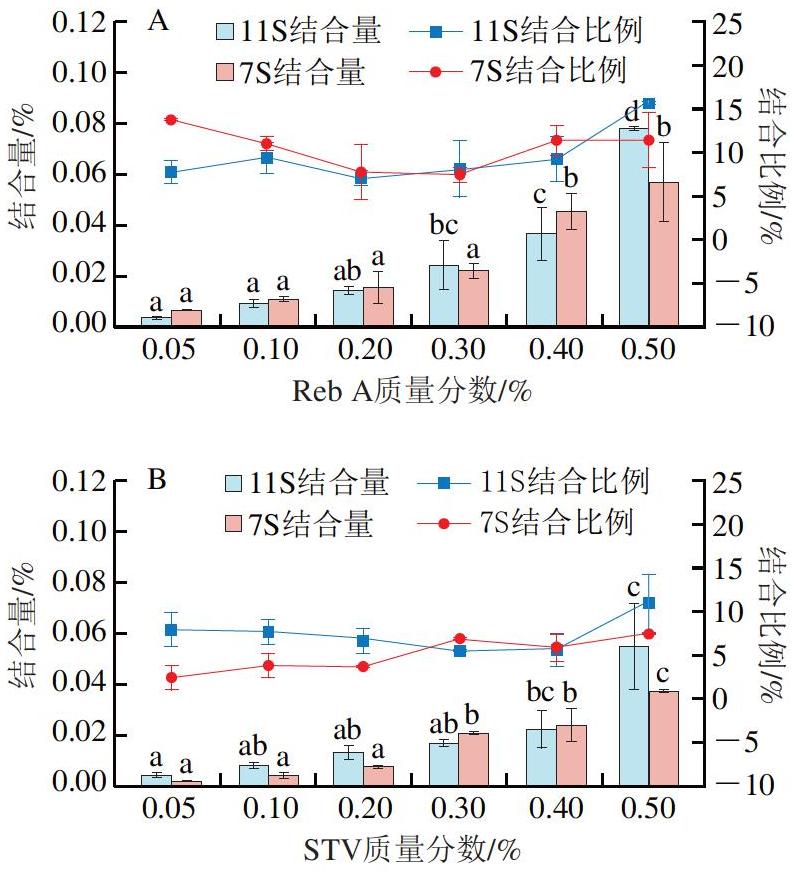
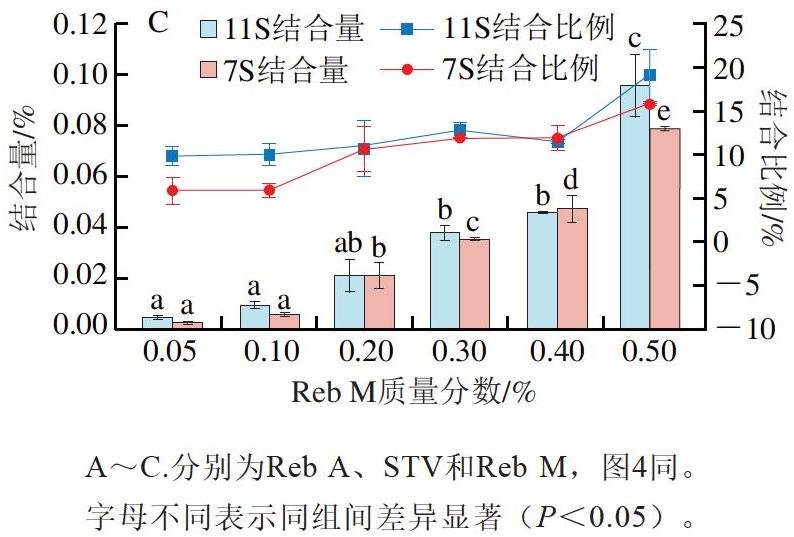
图2 不同质量分数的3 种SGs与11S和7S蛋白的结合量和结合比例
Fig. 2 Binding capacities and binding ratios of three SGs at different concentrations with 11S and 7S proteins
不同结构SGs对11S与7S的选择性结合也表现出较大差异。Reb A与11S和7S的结合量均随Reb A质量分数的增加而显著递增。Reb A质量分数较低时(0.05%~0.4%),与两种蛋白的结合量无明显区别。当Reb A质量分数提高至0.5%时,11S结合量为0.078%,而7S的结合量仅为0.057%(P<0.05)(图2A)。STV与Reb M两者呈现出相似的变化趋势,在低浓度(0.05%~0.1%)及高浓度(0.5%)下,二者与11S结合量明显高于7S;中质量分数时(0.2%~0.4%),则11S与7S的结合量差异较小(图2B、C)。值得注意的是,尽管SGs与11S和7S的结合量随SGs质量分数的升高而有所提升,但其结合比例在测算区间内整体波动于较低范围,即使在最高SGs质量分数(0.5%)下,与11S和7S的结合比例也均小于20%。
2.2 内源色氨酸荧光光谱测定
蛋白质的内源荧光主要来源于色氨酸、酪氨酸和苯丙氨酸3 种氨基酸残基,其中色氨酸的荧光量子产率较高,且对周围环境的敏感性强,因此常被用作研究蛋白质构象变化的探针[27]。如图3所示,SGs引起两种大豆蛋白结构的猝灭程度具有强烈的浓度依赖性。当SGs在体系中的质量分数低于0.1%时,11S和7S的荧光强度的变化并不明显,表明低浓度SGs所诱导的色氨酸残基微环境的改变较为有限。但随着添加的SGs浓度增加,11S蛋白和7S蛋白的荧光强度下降,且11S和7S蛋白的最大发射波长均表现出不同程度的蓝移现象(例如在STV的作用下,11S蛋白的发射峰位从340 nm移至336 nm,而7S蛋白则从343 nm移至341 nm),指示色氨酸残基可能被包裹进由SGs与蛋白形成的疏水结合位点中,表明SGs与蛋白发生了相互作用并诱导了微环境极性的改变,这也与随着SGs质量分数上升结合量增加的结果相印证。
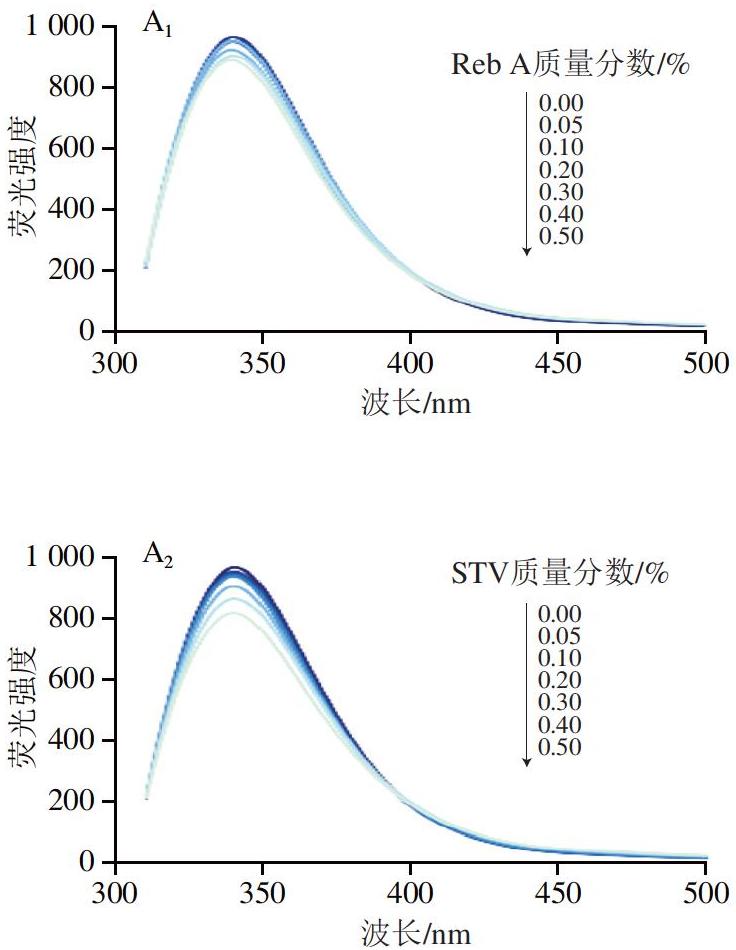
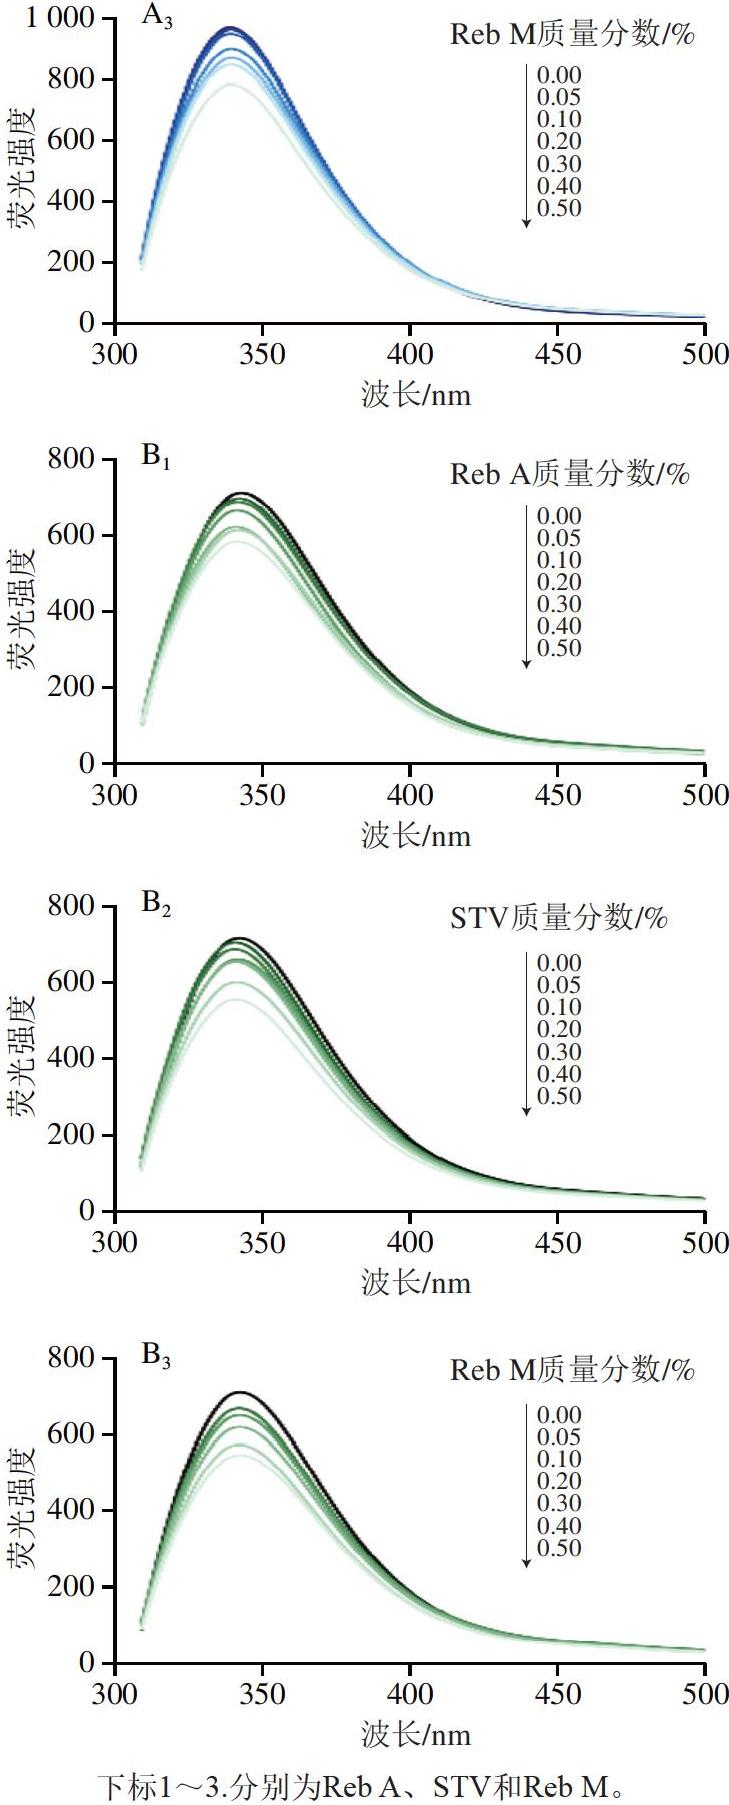
图3 SGs对11S(A)、7S(B)内源色氨酸荧光的影响
Fig. 3 Effects of SGs on intrinsic tryptophan fluorescence of 11S (A) and 7S (B)
如图4所示,3 种SGs的猝灭常数均低于最大动态扩散猝灭常数(2.0×10¹⁰ mol/(L·s)),表明SGs对大豆蛋白的荧光猝灭机制主要为动态猝灭,这与Wan Zhili等[28]所报道的猝灭现象一致,体现了SGs与11S和7S主要通过弱相互作用(如疏水相互作用)形成复合物。此外,由图4可知,不同SGs的猝灭常数不同,这与SGs的疏水性和分子结构密切相关。Reb M表现出最高的猝灭常数,这可能源于Reb M丰富的外周糖基团与蛋白表面形成了多点氢键网络。这种结合虽然难以触及深埋的疏水核,但通过改变蛋白表面的电子云密度及微环境极性,增加非辐射跃迁途径,导致更加明显的荧光猝灭[29]。
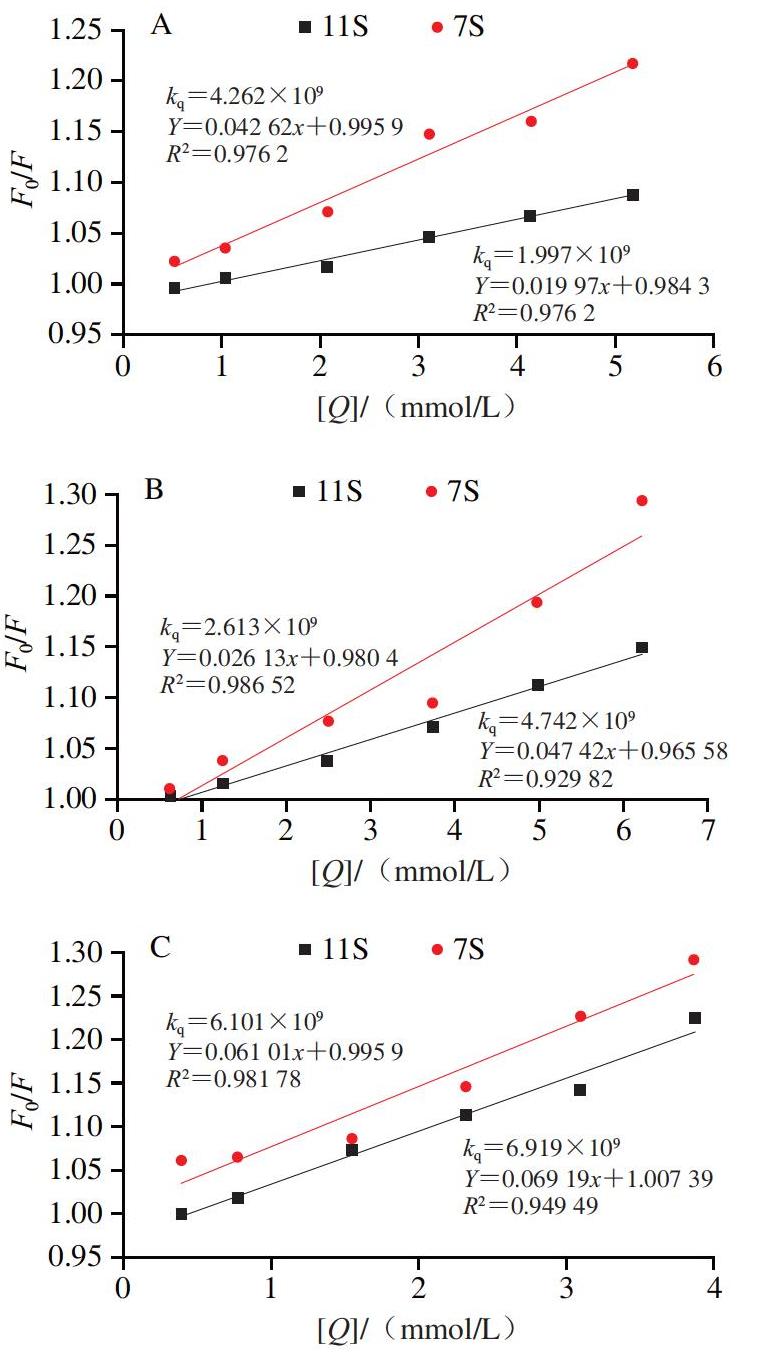
图4 SGs对11S和7S的荧光猝灭Stern-Volmer曲线
Fig. 4 Stern-Volmer curves for the fluorescence quenching of 11S and 7S by SGs
此外,0.5%的Reb A与Reb M使7S荧光猝灭的强度均高于11S,然而结合特性的结果表明Reb A和Reb M与7S的结合量小于11S,推测这一看似矛盾的现象可能与11S和7S的分子构象有关。7S以相对松散的三聚体形式存在,其构象更为松散,有利于小分子Reb A和Reb M进入或接近其疏水区域,从而引起更显著的疏水微环境重排和荧光信号变化,而11S为致密的六聚体结构,内部疏水腔体封闭性强,对小分子的进入存在明显的空间位阻效应。这些结果表明SGs的糖基数、疏水性以及大豆蛋白亚基结构特征共同决定了二者之间的结合方式与荧光猝灭行为。
2.3 CD分析
如图5所示,远紫外CD光谱进一步揭示了SGs对大豆蛋白二级结构的影响。11S与7S在208 nm和222 nm波长处均显现典型的α-螺旋双负峰特征。二级结构拟合结果显示,SGs的引入诱导了两种大豆蛋白组分截然不同的结构响应(图5C),这与前述荧光光谱观测到的蛋白特异性相互作用高度契合。对于11S,SGs的结合均使其α-螺旋比例有所上升,例如与Reb M结合后α-螺旋比例由20.9%上升至26.0%,表明SGs可能通过弱的疏水和氢键作用使11S的部分无规卷曲或较松散结构向更有序的α‑螺旋转变,类似的二级结构变化也在STV与牛乳蛋白的复合体系中被报道[30],表明少量SGs的弱相互作用可能对球蛋白结构具有一定的构象稳定作用。
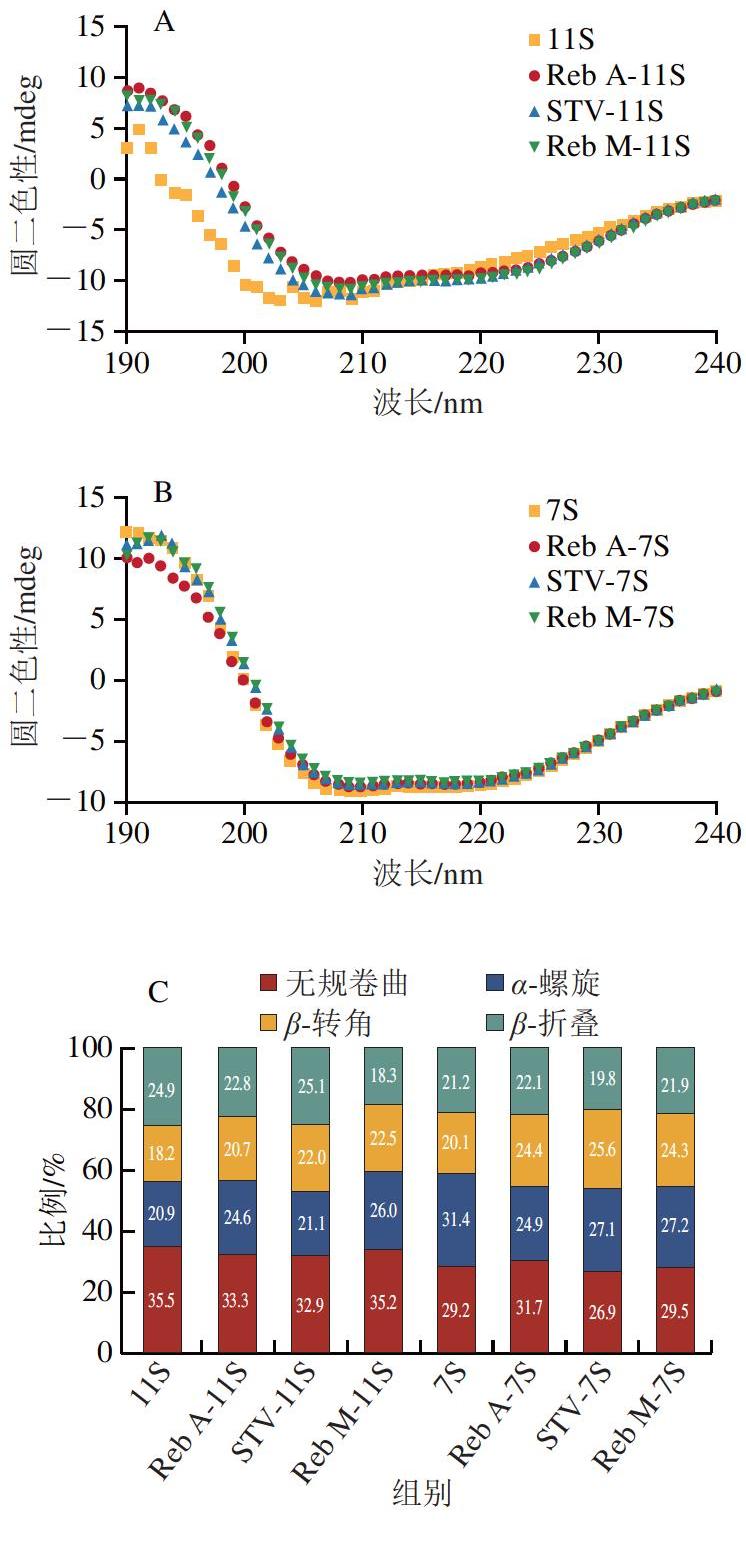
图5 不同SGs与11S(A)和7S(B)的远紫外CD曲线及相应的二级结构变化(C)
Fig. 5 Far-UV CD spectra of 11S (A), 7S (B) and their complexes with SGs and their secondary structure contents (C)
相反,7S在结合SGs后,α-螺旋含量普遍降低,伴随无规卷曲或β-转角比例普遍增加。这归因于7S相对疏松的亚基组装形式[31],SGs的结合扰动了维持其构象稳定的分子内氢键网络,导致二级结构松弛与部分疏水核心区域暴露[32],这也与荧光光谱中7S表现出更强猝灭效应的结果相印证,进一步证实了其柔性结构更易受到小分子的扰动。上述结果证实,SGs对大豆蛋白构象的调控作用受到蛋白亚基自身结构的影响。
2.4 FTIR分析
FTIR图谱可验证复合物中主要的作用力类型以提供更全面的结构信息[33]。如图6A所示,在3 200~3 600 cm-1 区间,SGs的加入导致O—H伸缩振动峰强度增加并发生显著频移(如Reb M-7S体系与7S相比从3 285.3 cm-1移至3 394.0 cm-1),这一蓝移现象及峰强度的增加主要归因于SGs分子中大量糖基羟基信号的叠加,以及SGs对大豆蛋白原有氢键网络的重组作用。这种显著的谱位移表明SGs通过其丰富的羟基与蛋白残基侧链发生了强烈的相互作用,改变了体系内氢键的分布状态与微环境极性,从而诱导了多肽链的重排。在指纹区,酰胺I带(主要为C=O伸缩)和酰胺II带(N—H弯曲/C—N伸缩)的波数移动反映了蛋白骨架的变化。如图6A所示,7S和11S的FTIR谱图呈现出类似的变化,添加SGs后酰胺I带均发生偏移(如11S从1 654.3 cm-1移至1 658~1 661 cm-1区间),且峰强度减弱。这一光谱学行为表明SGs中的羟基(—OH)或糖基可能与大豆蛋白的极性基团(如C=O或N—H)发生了氢键相互作用,导致分子内氢键网络发生变化[32],同时疏水相互作用可能通过SGs的二萜骨架与大豆蛋白的疏水区域(如苯丙氨酸残基)结合而发生[34],协同诱导了多肽链的重排与二级结构的转变 (图6B)。如图6B1所示,11S的α-螺旋比例在结合后均有提升,这与CD光谱所观察到的构象演变趋势相印证。
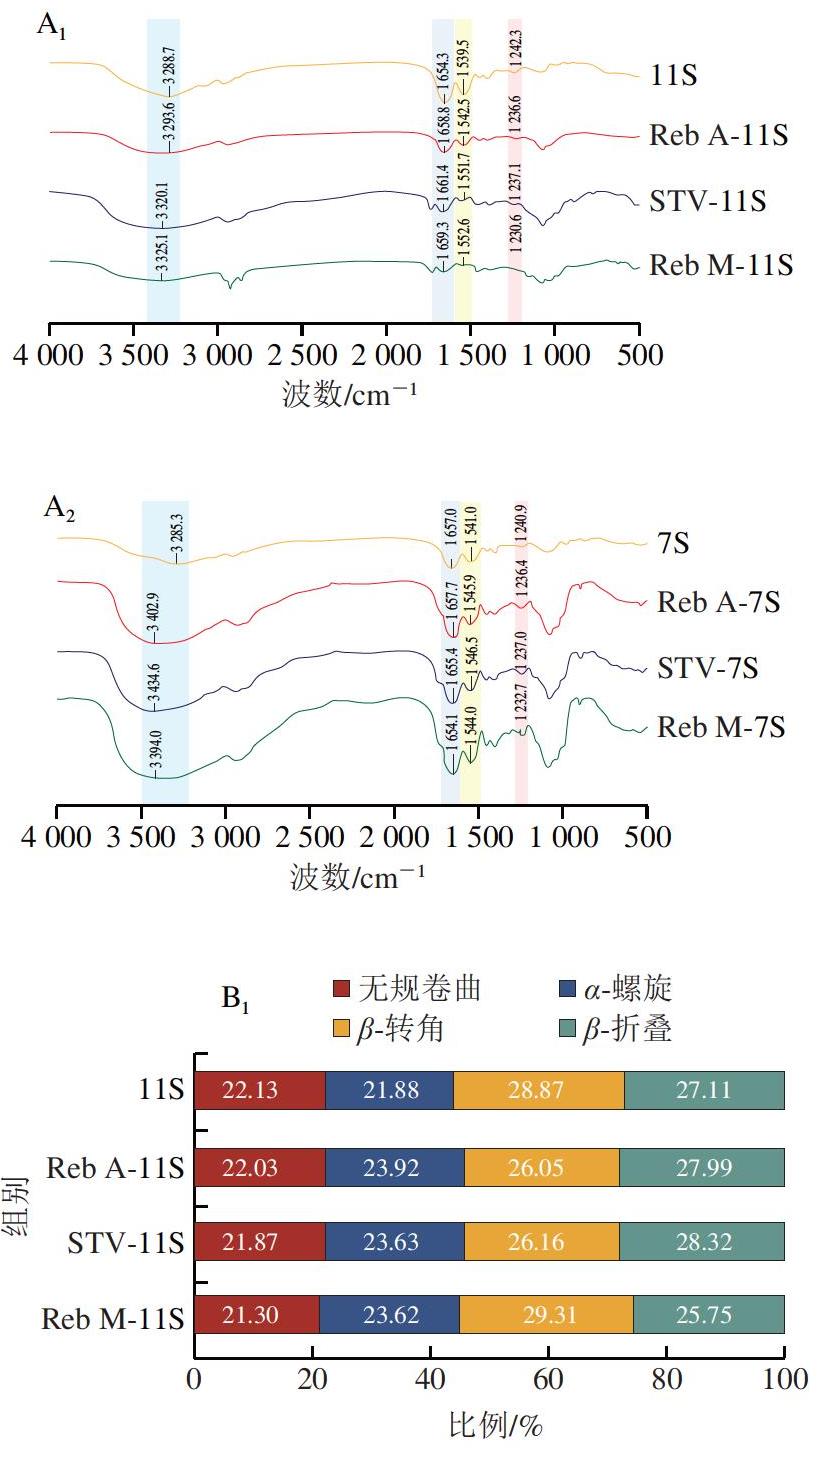
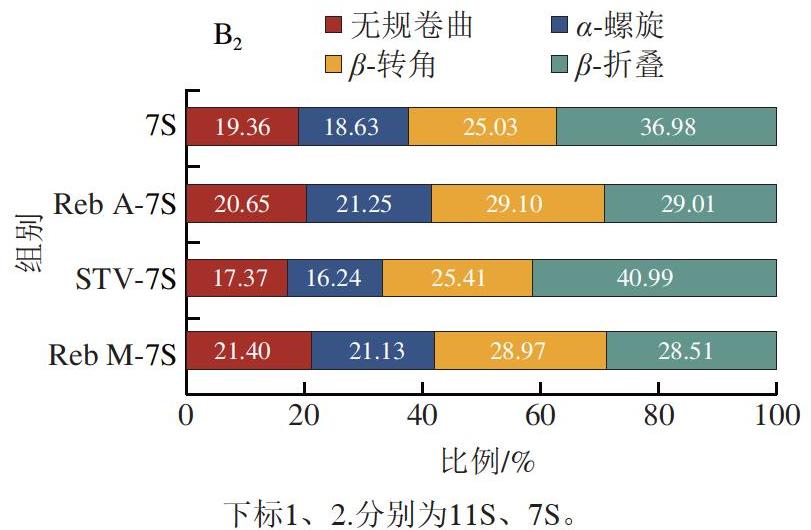
图6 SGs与11S和7S的FTIR曲线(A)及二级结构变化(B)
Fig. 6 FTIR spectra (A) and secondary structure contents (B) of 11S,7S and their complexes with SGs
以上结果进一步表明,大豆蛋白组分与小分子SGs主要通过氢键和疏水相互作用,形成了蛋白-SGs复合物,并在结合过程中改变了大豆蛋白的空间结构。
2.5 SGs与大豆蛋白相互作用的分子机制
通过分子模拟进一步探究了SGs与大豆蛋白的相互作用机制及结合能力。蛋白质对小分子风味的掩蔽作用并非直接抑制受体,而是通过“分子截留”降低了配体的游离浓度[35-36]。如表3所示,3 种SGs与11S和7S均能形成结合能低于-5 kcal/mol的稳定复合物,且3 种SGs单体与11S和7S之间的结合能数值相近,但结合模式存在显著差异(图7)。在11S蛋白体系中,Reb A表现出最优结合能,其结合过程依赖于氢键网络与疏水作用的协同效应,即一方面Reb A的多个糖基通过羟基与PHE-152、GLN-41等氨基酸残基形成较强的氢键;另一方面,其骨架适配于11S的结合口袋。这种稳定的适配性与氢键约束力,解释了CD中11S蛋白α-螺旋含量上升的现象(图5C),即SGs的精准嵌入不仅减少了暴露的极性基团,更通过增强分子内作用力起到了构象稳定效应。这意味着11S能够更有效地将Reb A封装在其疏水内部,减弱其与苦味受体TAS2Rs的结合几率,从而产生更佳的掩蔽效果。相比之下,STV由于糖基较少,氢键贡献不足,导致结合能较弱。Reb M的结合能与STV接近,但其结合的氢键数量更多,这说明Reb M可能与大豆蛋白发生氢键相互作用的能力较疏水相互作用更强。
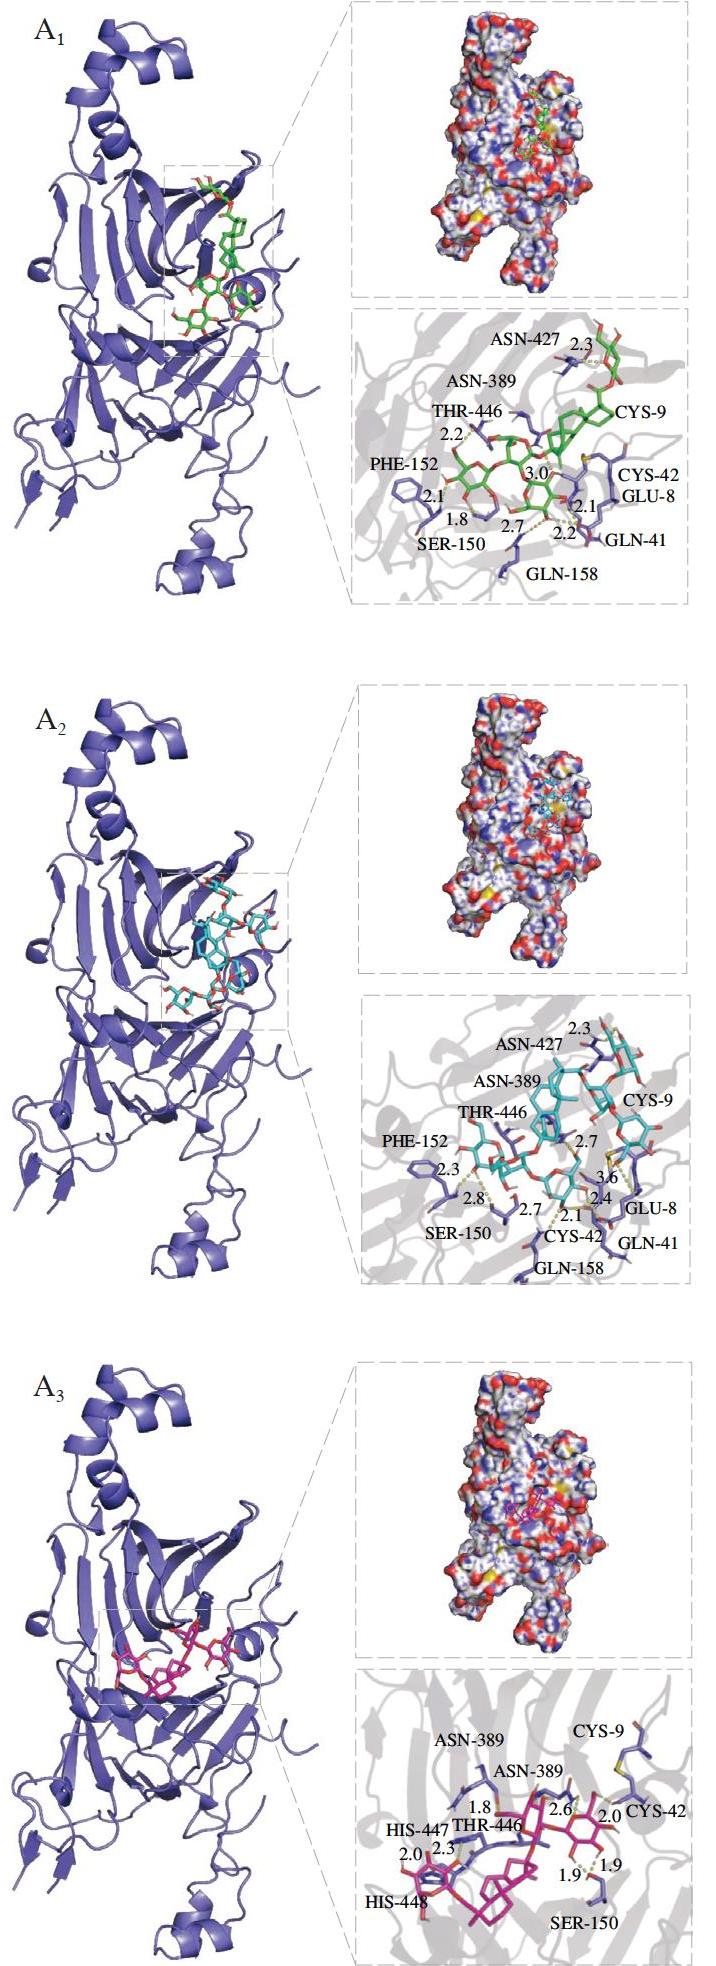
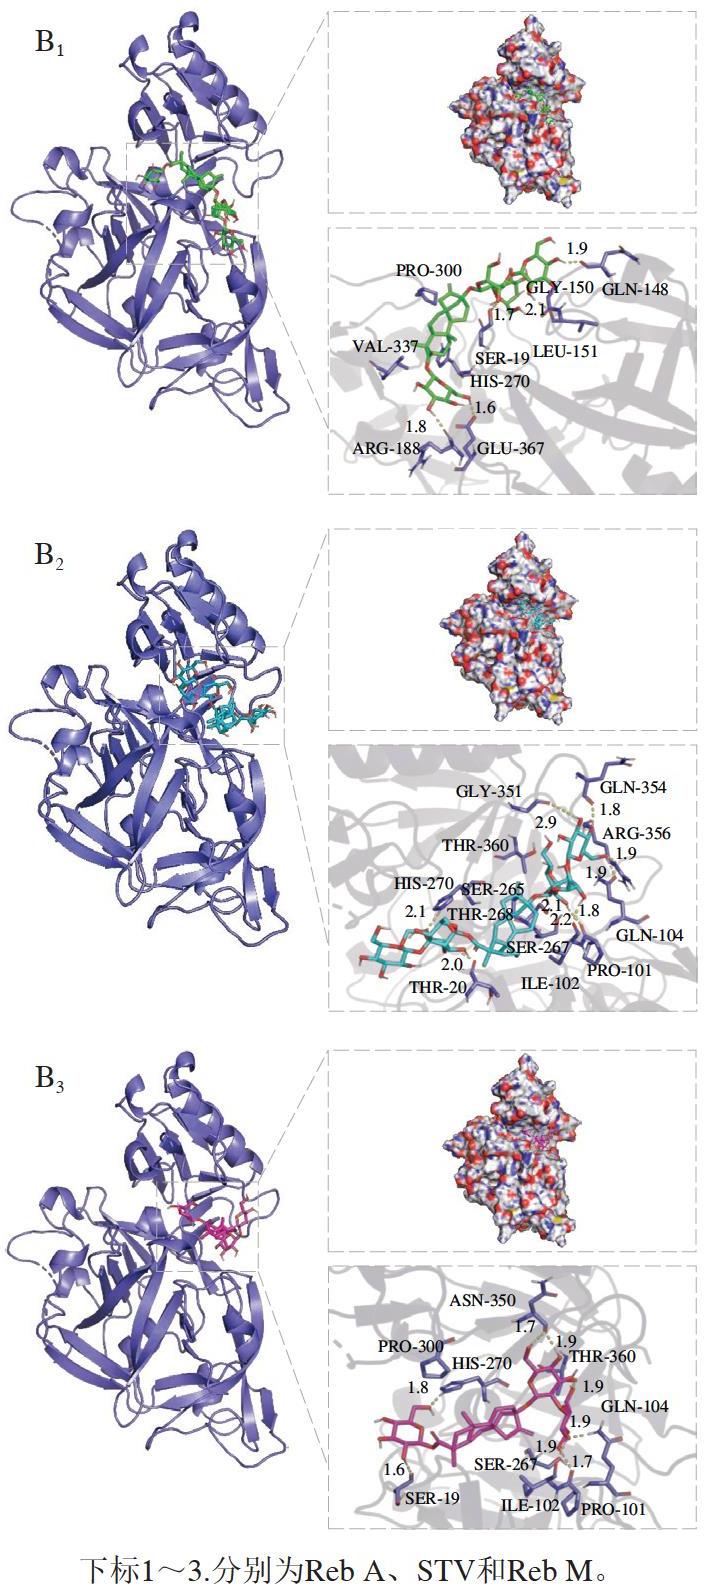
图7 不同SGs与11S(A)、7S(B)互作分子机制
Fig. 7 Molecular mechanisms of interaction between SGs and 11S (A) and 7S (B)
表3 SGs与11S和7S相互作用的结合能及结合位点
Table 3 Binding energy and binding sites of interactions between SGs and 11S/7S
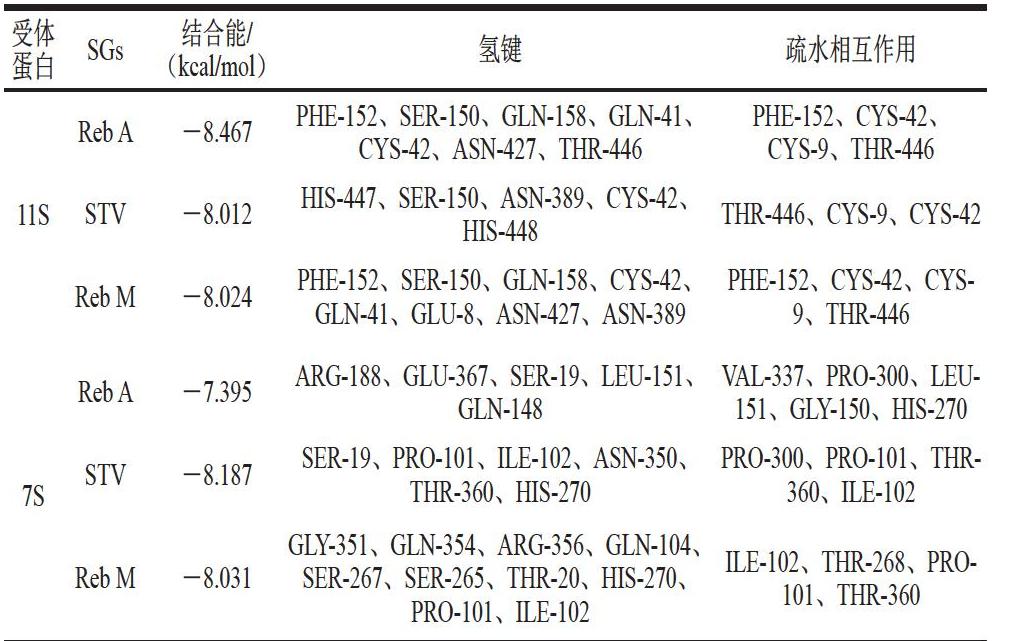
受体蛋白SGs结合能/(kcal/mol)氢键疏水相互作用Reb A-8.467PHE-152、SER-150、GLN-158、GLN-41、PHE-152、CYS-42、CYS-42、ASN-427、THR-446CYS-9、THR-44611SSTV-8.012HIS-447、SER-150、ASN-389、CYS-42、HIS-448THR-446、CYS-9、CYS-42 Reb M-8.024PHE-152、SER-150、GLN-158、CYS-42、PHE-152、CYS-42、CYS-GLN-41、GLU-8、ASN-427、ASN-3899、THR-446 Reb A-7.395ARG-188、GLU-367、SER-19、LEU-151、VAL-337、PRO-300、LEU-GLN-148151、GLY-150、HIS-270 STV-8.187SER-19、PRO-101、ILE-102、ASN-350、PRO-300、PRO-101、THR-7STHR-360、HIS-270360、ILE-102 GLY-351、GLN-354、ARG-356、GLN-104、Reb M-8.031SER-267、SER-265、THR-20、HIS-270、ILE-102、THR-268、PRO-PRO-101、ILE-102101、THR-360
在7S蛋白体系中,Reb A对7S的结合能反而最弱,提示7S在改善Reb A苦味方面的潜力可能不及11S。这一现象主要归因于空间位阻效应,7S的主要结合腔体疏水性较强且空间狭窄,Reb A较多的糖基团带来的较大分子体积和强极性导致其难以深入结合位点内部,存在显著的极性错配与空间排斥[37-38]。反观Reb M,尽管糖基更多,但其在特定构象下可能通过表面多点吸附而非嵌入内部口袋的方式与蛋白结合,从而维持了较高的亲和力,这与前文内源色氨酸荧光光谱的结果吻合。
2.6 SGs单体及SGs-大豆蛋白组分复合物的静态感官特征
为明确大豆蛋白组分对SGs感官特性的调控作用,本研究依据标准化的感官评价体系(表2),组织评价小组对3 个质量分数(0.1%、0.3%、0.5%)条件下的SGs单体及其蛋白复合物体系进行了定量描述分析。
如表4所示,在质量分数0.1%条件下,3 种SGs呈现出鲜明的特征风味差异,与文献[11]报道的典型特征吻合。Reb A甜度中等但伴随显著苦/涩后味,STV苦味与涩后味最强且甜味持久度低,Reb M则展现出独特优势,甜味感知到的速度最快且后味最为干净(苦后味和涩后味强度最低)。11S和7S的引入对低浓度SGs的负面风味具有明显的改善作用,且对甜味感知强度没有显著影响,推测其作用机制为通过疏水与氢键相互作用优先结合呈苦、涩味的疏水性分子基团。对于Reb A,7S蛋白的加入有效抑制了其苦/涩后味,而11S则降低了其清凉感和苦后味。对于STV,11S和7S均在一定程度上削弱了其特征性的苦味与涩味,其中7S对清凉感的掩蔽效果更为显著。此外,7S对Reb A和STV的涩味、清凉感、苦后味等负面感知的降低效果均优于11S。相比之下,由于Reb M本身的感官品质已较优,蛋白的加入并未带来进一步的风味提升,反而导致苦味和涩味轻微上升,但Reb M整体风味优势未受显著影响。
表4 0.1% SGs的静态感官描述性属性结果
Table 4 Results of static descriptive sensory attributes for 0.1% SGs
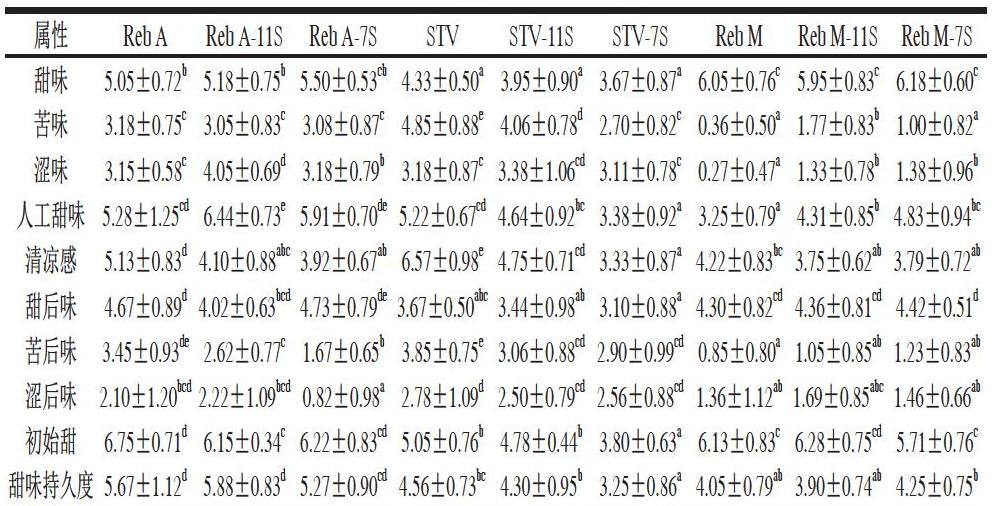
属性Reb AReb A-11SReb A-7SSTVSTV-11SSTV-7SReb MReb M-11SReb M-7S甜味5.05±0.72 b 5.18±0.75 b 5.50±0.53 cb 4.33±0.50 a 3.95±0.90 a 3.67±0.87 a 6.05±0.76 c 5.95±0.83 c 6.18±0.60 c苦味3.18±0.75 c 3.05±0.83 c 3.08±0.87 c 4.85±0.88 e 4.06±0.78 d 2.70±0.82 c 0.36±0.50 a 1.77±0.83 b 1.00±0.82 a涩味3.15±0.58 c 4.05±0.69 d 3.18±0.79 b 3.18±0.87 c 3.38±1.06 cd 3.11±0.78 c 0.27±0.47 a 1.33±0.78 b 1.38±0.96 b人工甜味5.28±1.25 cd 6.44±0.73 e 5.91±0.70 de 5.22±0.67 cd 4.64±0.92 bc 3.38±0.92 a 3.25±0.79 a 4.31±0.85 b 4.83±0.94 bc清凉感5.13±0.83d4.10±0.88abc3.92±0.67ab6.57±0.98e4.75±0.71cd3.33±0.87a4.22±0.83bc3.75±0.62ab3.79±0.72ab甜后味4.67±0.89d4.02±0.63bcd4.73±0.79de3.67±0.50abc3.44±0.98ab3.10±0.88a 4.30±0.82cd4.36±0.81cd4.42±0.51d苦后味3.45±0.93de2.62±0.77c1.67±0.65b3.85±0.75e3.06±0.88cd2.90±0.99cd0.85±0.80a1.05±0.85ab1.23±0.83ab涩后味2.10±1.20bcd2.22±1.09bcd0.82±0.98a2.78±1.09d2.50±0.79cd2.56±0.88cd1.36±1.12ab1.69±0.85abc1.46±0.66ab初始甜6.75±0.71d6.15±0.34c6.22±0.83cd5.05±0.76b4.78±0.44b3.80±0.63a6.13±0.83c6.28±0.75cd5.71±0.76c甜味持久度5.67±1.12d5.88±0.83d5.27±0.90cd4.56±0.73bc4.30±0.95b3.25±0.86a4.05±0.79ab3.90±0.74ab4.25±0.75b
注:同行字母不同表示差异显著(P<0.05),下同。
如表5、6所示,当SGs质量分数分别升高至0.3%和0.5%时,风味特征更加凸显。各样品的甜味均随浓度有所升高,其中Reb M的甜味得分显著高于同浓度的其他样品,而STV随质量分数升高引起了负面感官感受(如强烈苦味、涩味)急剧增强。与低质量分数不同,在中高质量分数条件下,SGs与大豆蛋白复合物的甜味评分普遍低于同浓度的SGs单体,其中与Reb M结合后的甜度下降最为显著。推测这种下降可能是由于随着浓度升高,更高比例的SGs与大豆蛋白组分结合,可被味蕾直接感知的游离SGs数量显著降低,使得甜味强度的下降达到了可被味蕾感知出的水平[39],而这种效应在结合比例最高的Reb M中尤为突出。在0.3%水平,蛋白复合物仍能通过风味屏蔽作用有效改善Reb A和STV的苦、涩味及清凉感,使整体风味更加柔和。然而,当质量分数升至0.5%时,SGs带来的强烈感官刺激已超过了低质量分数蛋白(0.1%)的调节阈值,蛋白对由于高质量分数Reb A和STV引起的苦涩味掩蔽作用变得有限。此外,0.5% Reb M与大豆蛋白组分结合反而导致苦味、苦后味略有增加,推测可能是大豆蛋白自身携带的微弱苦涩味及豆腥味,在高甜度背景下这类底味更容易被感知,导致整体风味结构更加复杂。
表5 0.3% SGs的静态感官描述性属性结果
Table 5 Results of static descriptive sensory attributes for 0.3% SGs
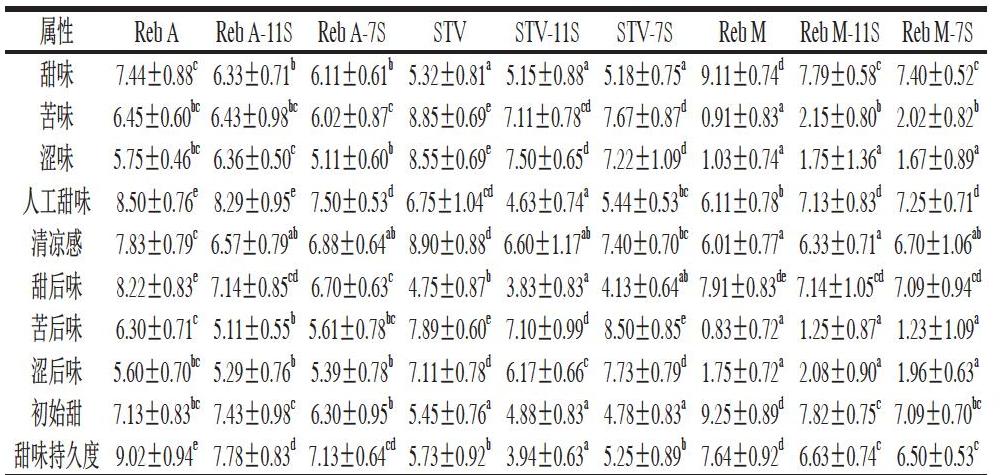
属性Reb AReb A-11SReb A-7SSTVSTV-11SSTV-7SReb MReb M-11SReb M-7S甜味7.44±0.88c6.33±0.71b6.11±0.61b5.32±0.81a5.15±0.88a5.18±0.75a9.11±0.74d7.79±0.58c7.40±0.52c苦味6.45±0.60 bc6.43±0.98 bc6.02±0.87 c8.85±0.69 e7.11±0.78 cd7.67±0.87 d0.91±0.83 a2.15±0.80 b2.02±0.82 b涩味5.75±0.46 bc6.36±0.50 c5.11±0.60 b8.55±0.69 e7.50±0.65 d7.22±1.09 d1.03±0.74 a1.75±1.36 a1.67±0.89 a人工甜味8.50±0.76e8.29±0.95e7.50±0.53d6.75±1.04cd4.63±0.74a5.44±0.53bc6.11±0.78b7.13±0.83d7.25±0.71d清凉感7.83±0.79c6.57±0.79ab6.88±0.64ab8.90±0.88d6.60±1.17ab7.40±0.70bc6.01±0.77a6.33±0.71a6.70±1.06ab甜后味8.22±0.83 e7.14±0.85 cd6.70±0.63 c4.75±0.87 b3.83±0.83 a4.13±0.64 ab7.91±0.83 de7.14±1.05 cd7.09±0.94 cd苦后味6.30±0.71c5.11±0.55b5.61±0.78bc7.89±0.60e7.10±0.99d8.50±0.85e0.83±0.72a1.25±0.87a1.23±1.09a涩后味5.60±0.70bc5.29±0.76b5.39±0.78b7.11±0.78d6.17±0.66c7.73±0.79d1.75±0.72a2.08±0.90a1.96±0.63a初始甜7.13±0.83 bc 7.43±0.98 c 6.30±0.95 b 5.45±0.76 a 4.88±0.83 a 4.78±0.83 a9.25±0.89 d 7.82±0.75 c 7.09±0.70 bc甜味持久度9.02±0.94 e7.78±0.83 d7.13±0.64 cd5.73±0.92 b3.94±0.63 a5.25±0.89 b7.64±0.92 d6.63±0.74 c6.50±0.53 c
表6 0.5% SGs的静态感官描述性属性结果
Table 6 Results of static descriptive sensory attributes for 0.5% SGs
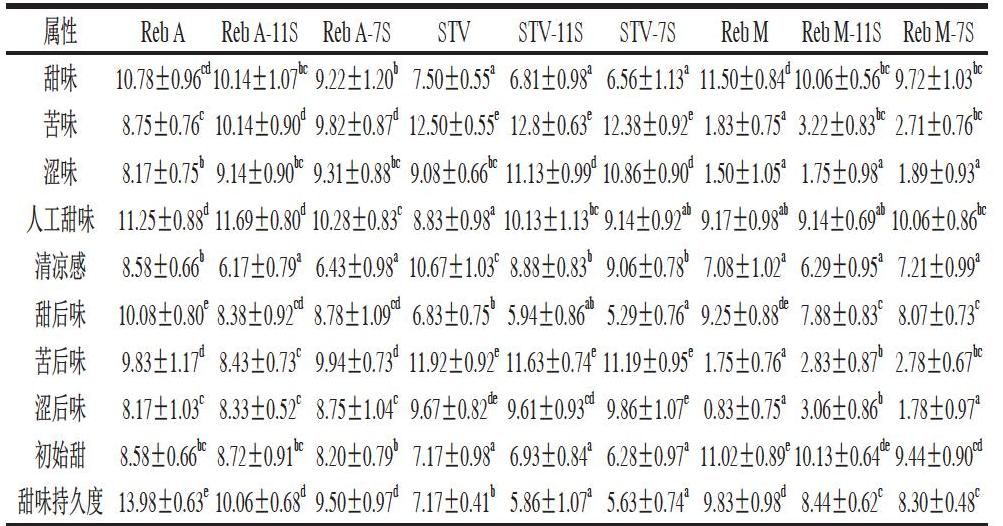
甜味10.78±0.96 cd 10.14±1.07 bc9.22±1.20 b 7.50±0.55 a 6.81±0.98 a 6.56±1.13 a 11.50±0.84 d 10.06±0.56 bc9.72±1.03 bc涩味8.17±0.75 b9.14±0.90 bc9.31±0.88 bc9.08±0.66 bc11.13±0.99 d10.86±0.90 d1.50±1.05 a1.75±0.98 a1.89±0.93 a e8.38±0.92cd8.78±1.09cd6.83±0.75b5.94±0.86ab5.29±0.76a9.25±0.88de7.88±0.83c8.07±0.73c苦后味9.83±1.17 d8.43±0.73 c9.94±0.73 d 11.92±0.92 e 11.63±0.74 e 11.19±0.95 e 1.75±0.76 a 2.83±0.87 b 2.78±0.67 bc涩后味8.17±1.03 c8.33±0.52 c8.75±1.04 c9.67±0.82 de9.61±0.93 cd9.86±1.07 e0.83±0.75 a3.06±0.86 b1.78±0.97 a初始甜8.58±0.66 bc8.72±0.91 bc8.20±0.79 b7.17±0.98 a6.93±0.84 a6.28±0.97 a11.02±0.89 e10.13±0.64 de9.44±0.90 cd甜味持久度13.98±0.63 e10.06±0.68 d9.50±0.97 d7.17±0.41 b5.86±1.07 a5.63±0.74 a9.83±0.98 d8.44±0.62 c8.30±0.48 c属性Reb AReb A-11SReb A-7SSTVSTV-11SSTV-7SReb MReb M-11SReb M-7S苦味8.75±0.76c10.14±0.90d9.82±0.87d12.50±0.55e12.8±0.63e12.38±0.92e1.83±0.75a3.22±0.83bc2.71±0.76bc人工甜味11.25±0.88d11.69±0.80d10.28±0.83c8.83±0.98a10.13±1.13bc9.14±0.92ab9.17±0.98ab9.14±0.69ab10.06±0.86bc清凉感8.58±0.66b6.17±0.79a6.43±0.98a10.67±1.03c8.88±0.83b9.06±0.78b7.08±1.02a6.29±0.95a7.21±0.99a甜后味10.08±0.80
3 结 论
本研究系统探究了3 种典型SGs(Reb A、STV、Reb M)与大豆分离蛋白组分(11S、7S)的结合行为及其对感官特性的影响。结合特性与分子模拟结果表明,SGs与大豆蛋白主要通过氢键、疏水作用形成非共价复合物(结合比例<20%);结合量受SGs糖基团数量的正向调节(Reb M>Reb A>STV),且高质量分数条件下11S的结合能力强于7S。光谱分析进一步证实,SGs的结合诱导了蛋白二级结构重排,且结构更具柔性的7S对SGs的结合响应更敏感。感官评价结果显示,大豆蛋白对风味的调控具有浓度依赖性。在低质量分数(0.1%)SGs时,大豆蛋白可在保持甜度的前提下掩蔽SGs的苦涩味,其中7S对涩味、清凉感、苦后味等负面感知的降低明显高于11S。在中质量分数(0.3%)SGs时,大豆蛋白则会降低甜味感知,仍能减轻Reb A和STV的部分负面感受,缓冲感官刺激。但在高质量分数(0.5%)SGs时,大豆蛋白在降低甜味感知的同时对Reb A和STV苦涩味掩蔽作用变得有限,Reb M的负面感受略有增加。本研究阐明了大豆蛋白与不同结构SGs的相互作用机制及其对甜味特性的调控作用,可为SGs在植物蛋白基质食品中的风味优化与可控释放提供理论依据。
[1] PRADA M, SARAIVA M, GARRIDO M V, et al. Perceived associations between excessive sugar intake and health conditions[J].Nutrients, 2022, 14(3): 640. DOI:10.3390/nu14030640.
[2] LIU Q, WANG M, HOU Y T, et al. Deciphering the multifaceted effects of artificial sweeteners on body health and metabolic functions:a comprehensive review and future perspectives[J]. Critical Reviews in Food Science and Nutrition, 2025, 65(27): 5394-5416. DOI:10.1080/10408398.2024.2411410.
[3] CARAKOSTAS M C, CURRY L L, BOILEAU A C, et al. Overview: the history, technical function and safety of rebaudioside A, a naturally occurring steviol glycoside, for use in food and beverages[J]. Food and Chemical Toxicology, 2008, 46(7): S1-S10. DOI:10.1016/j.fct.2008.05.003.
[4] VELESIOTIS C, KANELLAKIS M, VYNIOS D H. Steviol glycosides affect functional properties and macromolecular expression of breast cancer cells[J].IUBMB Life, 2022, 74(10): 1012-1028. DOI:10.1002/iub.2669.
[5] KWOK D, SCOTT C, STROM N, et al. Comparison of a daily steviol glycoside beverage compared with a sucrose beverage for four weeks on gut microbiome in healthy adults[J]. The Journal of Nutrition, 2024,154(4): 1298-1308. DOI:10.1016/j.tjnut.2024.01.032.
[6] ILIAS N, HAMZAH H, ISMAIL I S, et al. An insight on the future therapeutic application potential of Stevia rebaudiana Bertoni for atherosclerosis and cardiovascular diseases[J]. Biomedicine &Pharmacotherapy, 2021, 143: 112207. DOI:10.1016/j.biopha.2021.112207.
[7] GOYAL S K, SAMSHER, GOYAL R K. Stevia (Stevia rebaudiana) a bio-sweetener: a review[J]. International Journal of Food Sciences and Nutrition, 2010, 61(1): 1-10. DOI:10.3109/09637480903193049.
[8] BAHMANI K, AKBARI A, KAFKAS N E. Comprehensive insights into steviol glycosides as zero-glycemic sweeteners[J]. Journal of Food Composition and Analysis, 2025, 144: 107647. DOI:10.1016/j.jfca.2025.107647.
[9] YANG Y Y, LIU Y, XU M Y, et al. Hierarchical self-aggregation of multifunctional steviol glycosides in aqueous solutions[J]. Journal of Agricultural and Food Chemistry, 2024, 72(29): 16438-16448.DOI:10.1021/acs.jafc.4c02386.
[10] CEUNEN S, GEUNS J M C. Steviol glycosides: chemical diversity,metabolism, and function[J]. Journal of Natural Products, 2013, 76(6):1201-1228. DOI:10.1021/np400203b.
[11] TIAN X Y, ZHONG F, XIA Y X. Dynamic characteristics of sweetness and bitterness and their correlation with chemical structures for six steviol glycosides[J]. Food Research International, 2022, 151: 110848.DOI:10.1016/j.foodres.2021.110848.
[12] AHMAD J, KHAN I, BLUNDELL R, et al. Stevia rebaudiana Bertoni.: an updated review of its health benefits, industrial applications and safety[J]. Trends in Food Science & Technology,2020, 100: 177-189. DOI:10.1016/j.tifs.2020.04.030.
[13] WANG Y, ZHANG S, ZHENG L. Soy protein-based protein composite system: gelation, application, and challenges: a review[J]. European Food Research and Technology, 2025, 251(3): 311-325. DOI:10.1007/s00217-024-04623-8.
[14] 郭健. 大豆蛋白热聚集行为控制及其结构表征的研究[D]. 广州:华南理工大学, 2012: 53-57.
[15] SUI X N, ZHANG T Y, JIANG L Z. Soy protein: molecular structure revisited and recent advances in processing technologies[J]. Annual Review of Food Science and Technology, 2021, 12: 119-147.DOI:10.1146/annurev-food-062220-104405.
[16] HELLFRITSCH C, BROCKHOFF A, STÄHLER F, et al. Human psychometric and taste receptor responses to steviol glycosides[J].Journal of Agricultural and Food Chemistry, 2012, 60(27): 6782-6793.DOI:10.1021/jf301297n.
[17] MUDGAL S, KERESZTES I, FEIGENSON G W, et al. Controlling the taste receptor accessible structure of rebaudioside A via binding to bovine serum albumin[J]. Food Chemistry, 2016, 197: 84-91.DOI:10.1016/j.foodchem.2015.10.064.
[18] 万芝力. 大豆蛋白-甜菊糖苷相互作用及对界面主导食品体系的调控研究[D]. 广州: 华南理工大学, 2016: 35-40.
[19] 张童童. 甜菊糖苷的酶促糖基化及其表面活性的研究[D]. 无锡:江南大学, 2022: 37-42. DOI:10.27169/d.cnki.gwqgu.2022.000030.
[20] YANG Y Y, XU M Y, WAN Z L, et al. Novel functional properties and applications of steviol glycosides in foods[J]. Current Opinion in Food Science, 2022, 43: 91-98. DOI:10.1016/j.cofs.2021.11.004.
[21] BENUCCI I, LOMBARDELLI C, ESTI M. A comprehensive review on natural sweeteners: impact on sensory properties, food structure, and new frontiers for their application[J]. Critical Reviews in Food Science and Nutrition, 2025, 65(24): 4615-4633. DOI:10.1080/10408398.2024.2393204.
[22] WAN Z L, WANG J M, WANG L Y, et al. Enhanced physical and oxidative stabilities of soy protein-based emulsions by incorporation of a water-soluble stevioside-resveratrol complex[J]. Journal of Agricultural and Food Chemistry, 2013, 61(18): 4433-4440.DOI:10.27169/d.cnki.gwqgu.2022.000030.
[23] GUO J, YANG X Q, HE X T, et al. Limited aggregation behavior ofβ-conglycinin and its terminating effect on glycinin aggregation during heating at pH 7.0[J]. Journal of Agricultural and Food Chemistry,2012, 60(14): 3782-3791. DOI:10.1021/jf300409y.
[24] TENNEY K, HAYES J, EUSTON S, et al. Binding of caffeine and quinine by whey protein and the effect on bitterness[J]. Journal of Food Science, 2017, 82(2): 509-516. DOI:10.1111/1750-3841.13588.
[25] 田欣雨. 甜菊糖苷单体结构与其甜苦味感官表现的相关性研究[D]. 无锡: 江南大学, 2021: 17-23. DOI:10.27169/d.cnki.gwqgu.2021.000811.
[26] YANG Y Y, ZHANG J Y, LIU Y, et al. pH-dependent micellar properties of edible biosurfactant steviol glycosides and their oil-water interfacial interactions with soy proteins[J]. Food Hydrocolloids, 2022,126: 107476. DOI:10.1016/j.foodhyd.2021.107476.
[27] GORINSTEIN S, GOSHEV I, MONCHEVA S, et al. Intrinsic tryptophan fluorescence of human serum proteins and related conformational changes[J]. Journal of Protein Chemistry, 2000, 19(8):637-642. DOI:10.1023/A: 1007192017291.
[28] WAN Z L, WANG L Y, WANG J M, et al. Synergistic foaming and surface properties of a weakly interacting mixture of soy glycinin and biosurfactant stevioside[J]. Journal of Agricultural and Food Chemistry, 2014, 62(28): 6834-6843. DOI:10.1021/jf502027u.
[29] HE Y, YANG Z J, PI J W, et al. EGCG attenuates the neurotoxicity of methylglyoxal via regulating MAPK and the downstream signaling pathways and inhibiting advanced glycation end products formation[J]. Food Chemistry, 2022, 384: 132358. DOI:10.1016/j.foodchem.2022.132358.
[30] WANG M, WEI Z H, LI Y J, et al. Elucidation of the relationship between milk protein-stevioside interactions and interfacial layer properties based on multi-spectroscopy and interfacial rheology[J]. Food Chemistry, 2025,468: 142512. DOI:10.1016/j.foodchem.2024.142512.
[31] HOU Y C, HUANG L, XING G L, et al. Structure and functional properties of proteins from different soybean varieties as affected by the 11S/7S globulin ratio[J]. Foods, 2025, 14(5): 755. DOI:10.3390/foods14050755.
[32] YANG Y X, WANG Q M, TANG Y W, et al. Effects of ionic strength and (-)-epigallocatechin gallate on physicochemical characteristics of soybean 11S and 7S proteins[J]. Food Hydrocolloids, 2021, 119:106836. DOI:10.1016/j.foodhyd.2021.106836.
[33] HOFFMANN S V, JONES N C, RODGER A. Protein secondary structure determined from independent and integrated infrared absorbance and circular dichroism data using the algorithm SELCON[J]. QRB Discovery, 2025, 6: e10. DOI:10.1017/qrd.2025.4.
[34] 黄国, 陈骐, 池云峰, 等. 矢车菊素-3-葡萄糖苷与大豆蛋白相互作用的多重光谱分析及分子对接[J]. 食品科学, 2022, 43(22): 24-33.DOI:10.7506/spkx1002-6630-20220113-131.
[35] ALRUWAILI N W, LOPEZ E C, GAUR S, et al., Soy protein nanoemulsions improve stability and bioavailability of vitamin D[J].2017, 31(Suppl 1): lb388. DOI:10.1096/fasebj.31.1_supplement.lb388._
[36] GUICHARD E. Interactions between flavor compounds and food ingredients and their influence on flavor perception[J]. Food Reviews International, 2002, 18(1): 49-70. DOI:10.1081/FRI-120003417.
[37] ZHOU Z Y, LI W, WANG H J, et al. A computational approach to understanding and predicting the edulcorant profile of glucosyl steviol glycosides[J]. Foods, 2024, 13(12): 1798. DOI:10.3390/foods13121798.
[38] YANG Y Y, LIU Y, CAI J Y, et al. Self-aggregation of steviol glycosides modifies sweetness perception via interactions with oral mucosa[J]. Journal of Agricultural and Food Chemistry, 2025, 73(50):32144-32156. DOI:10.1021/acs.jafc.5c09101.
[39] KO W W, KIM S B, CHUNG S J. Effect of concentration range on the accuracy of measuring sweetness potencies of sweeteners[J].Food Quality and Preference, 2020, 79: 103753. DOI:10.1016/j.foodqual.2019.103753.