表1 实验样品的编号
Table 1 Codes of different experimental samples

索化夷 1,2,赵 欣 3,骞 宇 3,陈 娟 4,李 键 4,张 玉 1,2,阚建全 1,2,*
(1.西南大学食品科学学院,重庆 400715;2.重庆市特色食品工程技术研究中心,重庆 400715;3.重庆第二师范学院生物与化学工程系,重庆 400067;4.西南民族大学青藏高原研究院,四川 成都 610041)
摘 要:采用巢式聚合酶链式反应配合变性梯度凝胶电泳技术对永川豆豉发酵过程中微生物区系生态演化进行解析。结果表明:永川豆豉在制曲过程中霉菌和细菌呈对数增长,进入后发酵阶段菌落总数快速下降,并保持在较低水平。永川豆豉在制曲前期有多种乳酸菌生长,后期乳酸菌受霉菌增长抑制,种类减少。在后发酵阶段奥德赛芽孢杆菌(Bacillus odysseyi)、乳酸杆菌(Lactobacillus oligofermentans)和乳酸杆菌(Lactobacillus lindneri)是优势菌群。同时在制曲初期也发现了费格森埃希菌(Escherichia fergusonii)等杂菌生长。永川豆豉制曲阶段优势霉菌是总状毛霉(Mucor racemosus),同时伴有有性根霉(Rhizopus sexualis)、匍枝根霉(Rhizopus stolonifer)、大孢联轭霉(Syzygites megalocarpus)、米根霉(Rhizopus oryzae)的生长,后发酵阶段有接合酵母(Zygosaccharomyces sp.)的参与。
关键词:永川豆豉;微生物区系;巢式聚合酶链式反应;变性梯度凝胶电泳
传统大豆发酵食品生产是一个极为复杂、由多种微生物参与的发酵过程。微生态菌群的构成及演化决定了大豆发酵食品发酵过程中各类酶系的活性。蛋白酶、纤维素酶、淀粉酶、脂肪酶等酶活性决定了蛋白质、粗纤维、淀粉、脂肪等降解速度,而这一切决定了大豆发酵食品的色泽变化、质构变化、风味形成。因此,发酵食品中微生物的区系一直是国内外学者的研究重点 [1-3]。永川传统毛霉型采用的是自然开放制曲,参与发酵微生物较多。由于无法控制制曲微生物,存在病原菌参与的可能。到目前为止,已经在大豆发酵食品中检测到了腐生葡萄球菌(Staphylococcus saprophyticus)、伞枝犁头霉(Absidia corymbifera)、粪肠球菌(Enterococcus faecium)和微球菌(Micrococcus)等 [4-5]多种有害微生物。因此对于永川毛霉型豆豉发酵过程中微生物区系的分析非常重要,这不但有利于发酵菌株的标准化,也有利于发酵的安全控制。目前有关毛霉型豆豉微生物区系的研究还未见报道。
传统微生物分离手段主要是利用不同培养基来分离鉴定发酵微生物,但这种方法仅能对主体微生物进行简单分析 [6-9],无法满足复杂微生物区系的分析,不能对所有参与菌群进行确认。随着变性梯度凝胶电泳(denaturing gradient gel electrophoresis,DGGE)技术发展,对于复杂区系的微生物研究出现了改观。目前聚合酶链式反应(polymerase chain reaction,PCR)-DGGE技术已普遍应用于发酵食品的微生态研究。Chen Tingtao 等 [10]对曲霉型豆豉制曲过程中微生物区系变化进行了研究,发现了乳酸乳球菌(Lactococcus lactis subsp.)、米曲霉(Aspergillus oryzae)、淀粉毕赤酵母(Pichia farinose)等多种微生物参与发酵。Kim等 [4]利用该技术对家庭制作和工厂生产韩国大酱的微生物区系进行了分析,发现它们之间微生物构成无明显差异。Porcellato等 [11]对自然发酵酸乳微生态进行研究,检测到了多种乳酸菌。Thanh等 [12]研究了越南一种传统酒发酵初始微生物区系。这些研究都取得了比传统方法更丰富的微生物信息。
本实验采用巢式PCR(nested-PCR)配合DGGE技术对永川豆豉发酵过程中微生物区系生态演化进行分析,客观地评价微生物种类、数量及优势菌群的变化规律,阐明永川豆豉成熟过程中微生物发挥的功能作用,以期为永川毛霉型豆豉发酵标准化和安全控制奠定理论基础。
1.1 材料
永川毛霉型豆豉由永川豆豉食品有限公司提供,取经天然制曲发酵,处于不同发酵阶段的样品。原料大豆产地吉林省。永川毛霉型豆豉基本生产工艺流程:大豆筛选→浸泡→沥干→常压蒸料→冷却→自然发酵制曲→翻曲→拌和(食盐含量13~14 g/100 g、白酒、醪糟)→入罐发酵后熟→成品。
样本采集后,微生物总数测试样本用冰袋保藏,到实验室立即检测,S1~S16分别代表了不同发酵时期的永川毛霉型豆豉样品。详见表1。
表1 实验样品的编号
Table 1 Codes of different experimental samples
由于在微生物区系研究中对制曲过程采样密集,微生物区系研究样本代号及代号含义见表2。各样本采集后用冰袋保存,到实验室后立即进行总DNA提取。
表2 微生物区系实验样品代号及其代号含义
Table 2 Defi nitions of different experimental samples

1.2 试剂
土壤DNA小量提取试剂盒 美国Omega公司;四甲基乙二胺(tetramethylethylenediamine,TEMED)、Tris、过硫酸铵、尿素 美国Sigma公司;琼脂糖西班牙Gene公司;50×TAE、甘油、LB肉汤、LB营养琼脂 北京索莱宝生物科技有限公司;丙烯酰胺、甲叉双丙烯酰胺 美国Genview公司;T4连接试剂盒、Top10感受态细胞 北京天根生物技术有限公司。
1.3 仪器与设备
变性梯度凝胶电泳系统 美国Bio-Rad公司;G:Box EF凝胶成像系统 美国Syngene公司;WH-1微型旋涡混合仪 上海沪西分析仪器厂;H-2050R台式高速冷冻离心机 长沙湘仪离心机仪器有限公司;JH-722分光光度计 上海菁华科技仪器有限公司;THED台式恒温振荡器 太仓市实验设备厂。
1.4 方法
1.4.1 永川毛霉型豆豉发酵过程中微生物总量变化研究
豆豉发酵过程中细菌数量变化的测定,根据GB 4789.2-2010《食品安全国家标准食品微生物学检验菌落总数测定》标准进行测定 [13];豆豉霉菌和酵母菌数量变化的测定,根据GB 4789.15-2010《食品安全国家标准食品微生物学检验霉菌和酵母计数》进行测定 [14]。
1.4.2 永川毛霉型豆豉发酵过程中微生物基因组DNA提取
取5~6 g永川毛霉型豆豉样品放入研钵中,加入约占研钵体积2/3的液氮,立即在液氮中充分研磨豆豉直至细粉状(加入液氮3~5 次),称取50~100 mg豆豉样品,按提取试剂盒说明书中提供的方法进行后续操作。
1.4.3 16S rRNA V3区和18S rRNA的巢式PCR扩增
对豆豉宏基因组DNA采用巢式PCR技术进行两次扩增,相比较普通PCR方法,一方面增加扩增灵敏度,可以将痕量微生物检测到,另一方面可以减少非特异性扩增,增加PCR反应特异性。
1.4.3.1 永川毛霉型豆豉细菌16S rRNA V3区的巢式PCR扩增
细菌基因组16S rRNA V3区PCR扩增:以提取所得的宏基因组DNA为模板,用16S rRNA V3区通用正向引物 [4,13]27f(5’-AGA GTT TGA TCC TGG CTC AG-3’)和反向引物1492r(5’-GGC TAC CTT GTT ACG GAC TT-3’)进行扩增。25 μL反应体系:1 μL模板、引物各0.5 μL、2.5 μL 10×PCR Buffer(含Mg 2+)、2 μL dNTP、0.25 μL Taq DNA聚合酶、18.25 μL灭菌超纯水。反应程序为:95 ℃预变性5 min;94 ℃变性50 s,55 ℃退火1 min,72 ℃延伸1 min,30 个循环;72 ℃延伸5 min。扩增产物1%琼脂糖凝胶电泳检测后,置于-20 ℃冰箱保存备用,作为巢式PCR的模板。
细菌巢式PCR:以上面PCR产物作为模板,用引物338f [4](5’-ACT CCA CGG GAG GCA GCA G-3’)及518r (5’-ATT ACC GCG GCT GCT GG-3’),并在引物338f 的5’末端加上40 bp的GC夹子(CGC CCG CCG CGC GC G GCG GGC GGG GCG GGG GCA CGG GGG G) [15],进行扩增。50 μL反应体系:2 μL模板、引物各1 μL、5 μL 10×PCR Buffer(含Mg 2+)、4 μL dNTP、0.5 μL Taq DNA聚合酶、36.5 μL灭菌超纯水。采用降落PCR反应程序:94 ℃ 5 min,94 ℃ 30 s,65~55 ℃ 30 s(每个循环降低0.5 ℃),72 ℃ 30 s,20 个循环;94 ℃ 30 s,55 ℃ 30 s,72 ℃ 30 s,8 个循环;72 ℃延伸7 min。扩增产物1%琼脂糖凝胶电泳检测后,置于-20 ℃冰箱保存备用。
1.4.3.2 真菌18S rRNA的巢式PCR扩增
第一次PCR扩增:以所得的宏基因组DNA为模板,用18S rRNA通用正向引物NS1(F) [16-17](5’-GTA GTC ATA TGC TTG TCT C -3’)及FR1(R)(5’-AIC CAT TCA ATC GGT AIT -3’)进行扩增。25 μL反应体系:1 μL模板、引物各0.5 μL、2.5 μL 10×PCR Buffer(含Mg 2+)、2 μL dNTP(2.5 mmol/L)、0.25 μL Taq DNA聚合酶(5 U/μL)、18.25 μL灭菌超纯水。反应程序为:95 ℃预变性5 min,94 ℃变性50 s,55 ℃退火1 min,72 ℃延伸1 min,30 个循环,72 ℃延伸5 min。扩增产物1%琼脂糖凝胶电泳检测后,置于-20 ℃冰箱保存备用,作为巢式PCR的模板。
真菌巢式PCR:以第一次PCR产物作为模板,用引物FF390(F) [16](5’-CGATAACGAACGAGACCT-3’)及FR1(R)+(5’-AIC CAT TCA ATC GGT AIT-3’),并在引物FR1(R)+的5’末端加上40 bp的GC夹子(C GC CCG CCG CGC GCG GCG GGC GGG GCG GGG G CA CGG GGG G),进行扩增。50 μL反应体系:2 μL模板、引物各1 μL、5 μL 10×PCR Buffer(含Mg 2+)、4 μL dNTP、0.5 μL Taq DNA聚合酶、36.5 μL灭菌超纯水。采用降落PCR反应程序:94 ℃ 5 min,94 ℃ 30 s,65~55 ℃ 30 s(每个循环降低0.5 ℃),72 ℃ 30 s,20 个循环;94 ℃ 30 s,55 ℃ 30 s,72 ℃ 30 s,8 个循环;72 ℃延伸7 min。扩增产物1%琼脂糖凝胶电泳检测后,置于-20 ℃冰箱保存备用。
1.4.3.3 DGGE分析
参照朱扬玲 [18]的方法,采用Bio-Rad公司的Dcode TM通用突变检测系统对扩增产物进行电泳分离分析。
分别取不同样品的巢式PCR扩增产物30 μL与6 μL 6×Loading Buffer混合后加入到点样孔中,采用8%丙烯酰胺(丙烯酰胺、甲叉双丙烯酰胺质量比为19∶1)变性凝胶,30%~60%变性剂,在1×TAE缓冲液中,恒温60 ℃、恒压100 V条件下电泳6 h。电泳结束后取出胶放入200 mL DGGE染液中摇荡浸染40 min,使用紫外凝胶成像系统拍照。
用无菌手术刀切下特征条带。分别放入无菌2 mL离心管中,用枪头捣碎凝胶,加入50 μL灭菌超纯水,4 ℃放置过夜,取上清液作为模板,分别以不带GC夹的细菌和真菌的引物对回收DNA进行扩增,反应体系及程序分别与细菌和真菌巢式PCR一致。扩增产物1%琼脂糖凝胶电泳检测后,置于-20 ℃冰箱保存备用,作为克隆模板。
1.4.4 克隆测序
采用北京天根生化科技有限公司的pGM-T Vector克隆试剂盒,方法参照试剂盒说明书。采用北京索莱宝科技有限公司的质粒小提试剂盒提取质粒,方法参照试剂盒说明书。以提取所得质粒DNA作为模板,用引物采用对应的细菌和真菌不带GC夹子的巢式PCR引物程序进行扩增,扩增产物用1%琼脂糖凝胶电泳检测后,置于-20 ℃冰箱保存备用。
提取得到的质粒由生工生物工程(上海)股份有限公司测序,并在GenBank比对基因序列,检索相关微生物。
1.5 数据分析
根据各样本DGGE谱带得到的微生物区系数据矩阵用NTSYSpc2.1软件进一步进行分析,相似性系数采用Dice系数,非加权组平均法(unweighted pair-group method with arithmetic means,UPGMA)聚类分析。其他数据采用Excel 2003处理。
2.1 永川毛霉型豆豉发酵过程中微生物数量的变化
2.1.1 霉菌数量的变化

图1 豆豉发酵过程中霉菌数量的变化
Fig.1 Growth curve of mould in Douchi during different fermentation stages
由图1可知,永川毛霉型豆豉在制曲前期(S4~S6)数量较少,从S6开始生长旺盛。霉菌总数从S6的1.32×10 6CFU/g上升到制曲结束(S9)的1.760×10 9CFU/g,达到最大值。制曲在菌房中进行,环境温度、相对湿度等条件对霉菌生长非常适合,所以在制曲期间霉菌数量呈几何级数增长。在豆豉曲坯经过拌料进入后发酵阶段后(S10),由于拌和了13%~14%的食盐、醪糟、白酒等拌料,高浓度的食盐含量降低了豆豉的水分活度,微生物生长受到抑制,数量迅速下降。同时白酒对微生物有杀灭作用。进入后发酵阶段,是一个密闭高盐的环境,好氧菌无法生存。但一些厌氧耐盐的霉菌逐渐适应生长环境,在后发酵第75天(S13)出现了一个小生长高峰,不过随着大量次生代谢产物的增加和酸度的提高而逐渐下降。霉菌的生长状况与毛霉型豆豉中的蛋白酶、纤维素酶等多种酶类的活性密切相关 [19-20]。
2.1.2 细菌数量的变化
由图2可知,永川豆豉虽然属于毛霉型豆豉但在制曲和后发酵过程中也有细菌的参与。永川豆豉发酵过程中细菌的菌落总数在豆豉制曲和后发酵过程与霉菌的变化规律大致相同。细菌要早于霉菌在制曲第4天(S5)进入对数增长期,并在制曲结束时达到高峰2.44×10 9CFU/g。同样,细菌总数在拌料后开始急速下降,在发酵后的第45天(S12)达到最低值1.84×10 6CFU/g。在豆豉发酵中后期,细菌总数缓慢上升至1.0×10 8CFU/g左右后基本保持稳定,这是由于一些厌氧耐高渗透压的细菌适应了环境,开始缓慢增长的原因,这些耐高盐厌氧菌在后发酵中也起到了关键作用。这些细菌可产生蛋白酶、纤溶酶、淀粉酶及β-葡萄糖苷酶等与豆豉成熟相关的酶类 [19]。

图2 豆豉发酵过程中细菌数量的变化
Fig.2 Growth curve of bacteria in Douchi during different fermentation stages
2.1.3 酵母菌数量的变化
在制曲及后发酵过程中,使用传统分离培养方法没有分离到酵母菌。
2.2 PCR扩增结果
2.2.1 细菌PCR扩增结果
2.2.1.1 第一次PCR扩增结果
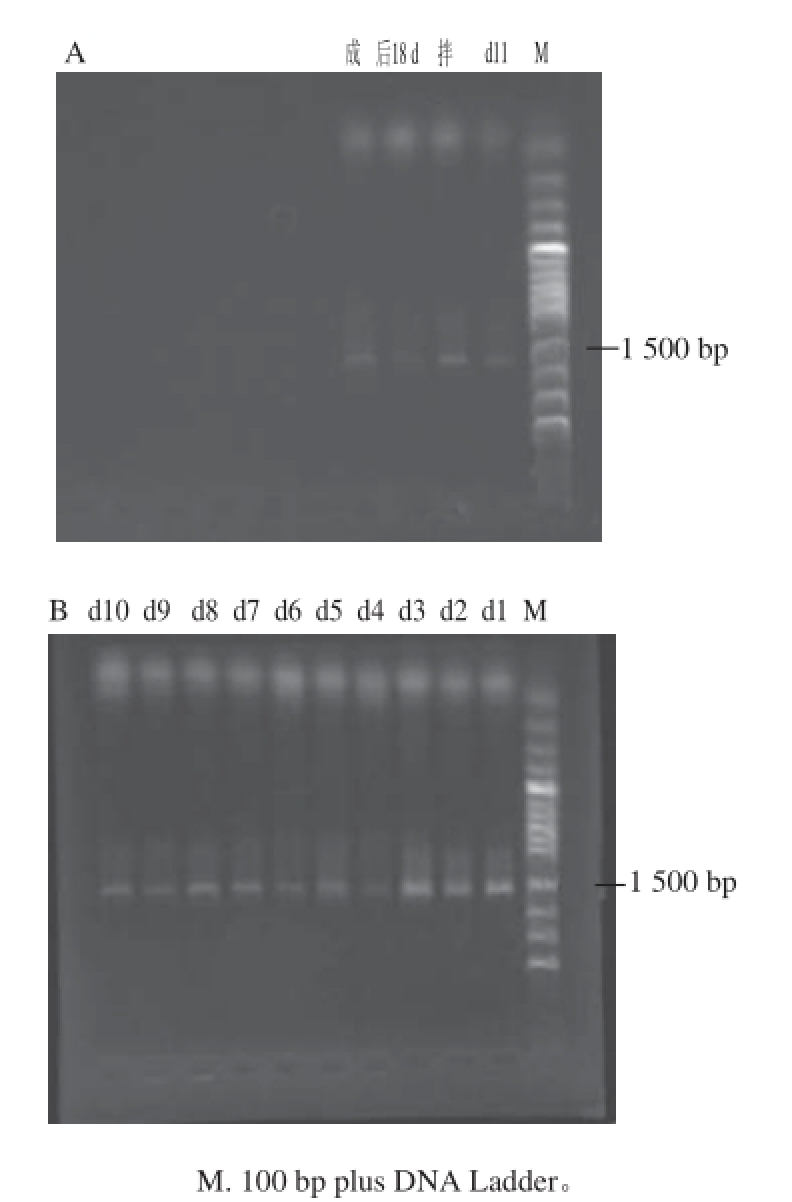
图3 细菌16S rRNA基因第一次PCR扩增产物的琼脂糖凝胶电泳图谱
Fig.3 Agarose gel electrophoresis of the fi rst PCR amplifi cation products of 16S rRNA gene from bacteria
由图3可知,对细菌16S rRNA基因进行第一次PCR扩增,各泳道均得到长度约1.5 kb的特异性扩增片段,符合预期扩增片段长度。
2.2.1.2 巢式PCR扩增结果
以第一次细菌PCR扩增产物作为模板,用GC338f和518r作为引物,扩增出长度约200 bp的片段,条带清晰,无杂带,结果见图4。
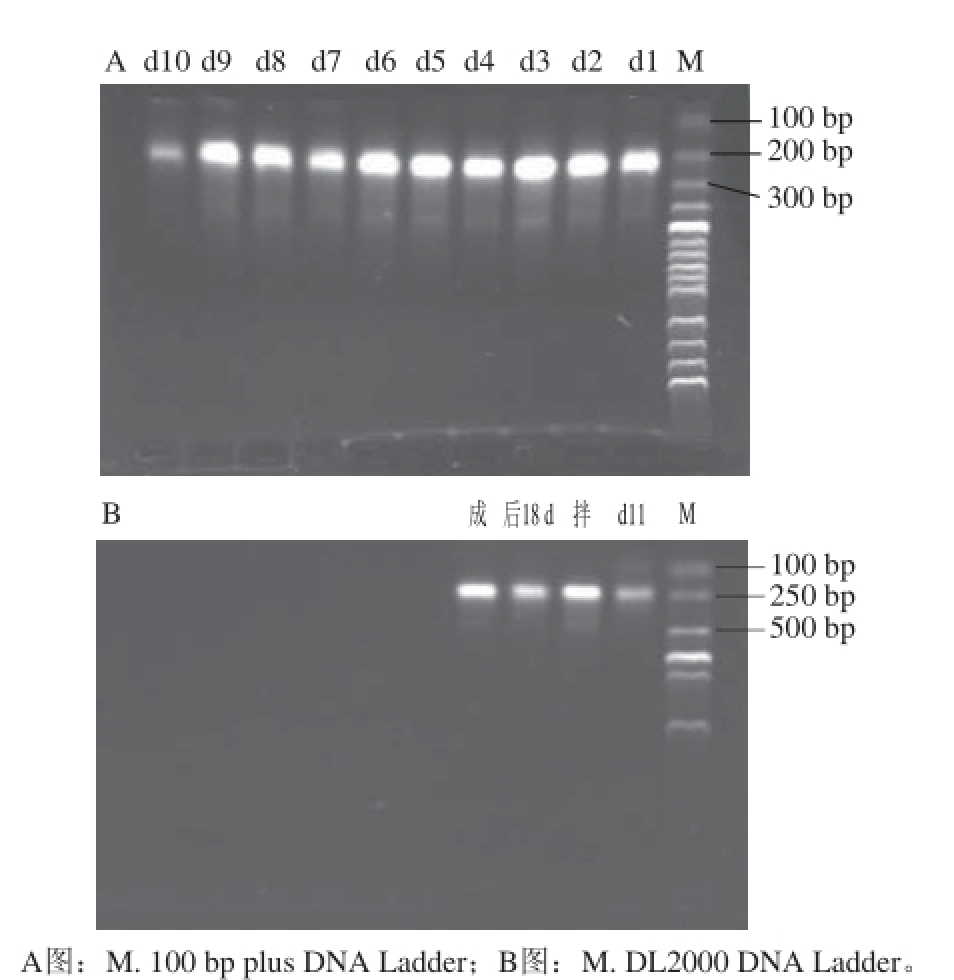
图4 细菌16S rRNA基因巢式PCR扩增产物的琼脂糖凝胶电泳图谱
Fig.4 Agarose gel electrophoresis of the nested-PCR amplifi cation products of 16S rRNA gene from bacteria
2.2.2 真菌PCR扩增结果
2.2.2.1 真菌基因组第一次PCR扩增结果
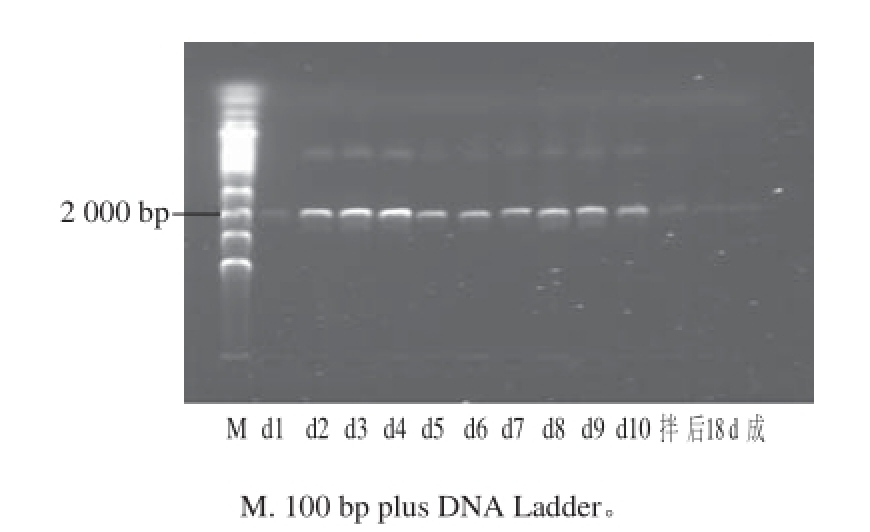
图5 真菌第一次PCR扩增产物的琼脂糖凝胶电泳图谱
Fig.5 Agarose gel electrophoresis of the fi rst PCR amplifi cation products of 18S rRNA gene from fungi
由图5可知,对真菌18S rRNA基因进行第一次PCR扩增,各泳道均得到特异性扩增片段,位于2 000 bp片段位置附近,符合预期扩增片段2 075 bp长度。其中发酵第一天和拌料、后发酵18 d、成品的PCR产物浓度偏低,这与样本微生物总量少有关。
2.2.2.2 巢式PCR扩增结果
由图6可知,以第一次真菌PCR扩增产物作为模板,用FF390(F)及GCFR1(R)+作为引物,扩增出长度约390 bp的片段,条带清晰,无杂带。
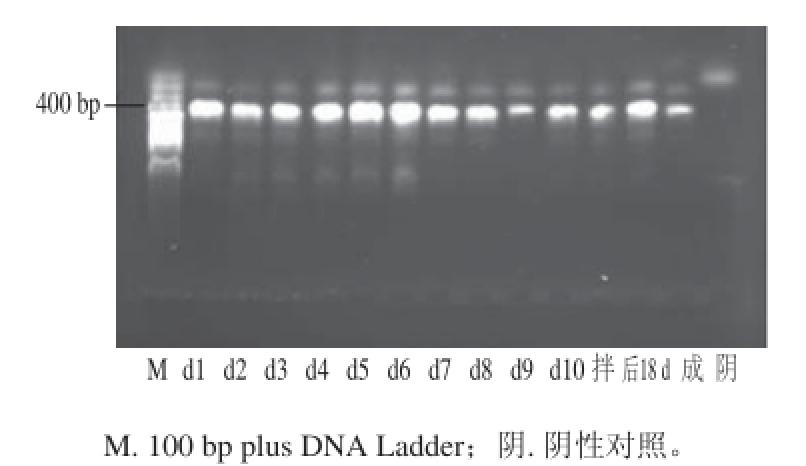
图6 真菌巢式PCR扩增产物的琼脂糖凝胶电泳图谱
Fig.6 Agarose gel electrophoresis of the nested-PCR amplifi cation products of 18S rRNA gene from fungi
2.2.3 DGGE分析结果
2.2.3.1 细菌水平变性梯度凝胶电泳图谱分析
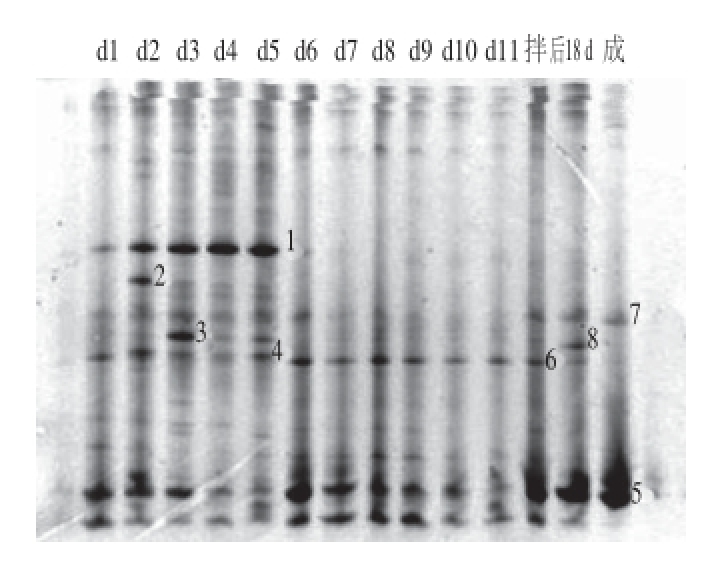
图7 不同豆豉样品中的细菌巢式PCR产物的水平DGE图谱
Fig.7 Time-travel DGGE profi le of bacterial nested-PCR amplifi cation products from different Douchi samples
由图7可知,豆豉发酵过程中的细菌巢式PCR扩增产物共出现8 条明显条带,分别被编号为1~8。经测序比对分析,分属于不同细菌,见表3。
表3 豆豉发酵过程中细菌鉴定结果
Table 3 Bacterial strains identifi ed during the fermentation of Douchi by DGGE

由表3可知,在永川毛霉型豆豉发酵过程中共鉴定得到了8 种细菌,分别是魏斯氏菌(Weissella cibaria)、费格森埃希菌(Escherichia fergusonii)、融合魏斯氏菌(Weissella confuse)、变异棒杆菌(Corynebacterium variabile)、乳酸杆菌(Lactobacillus lindneri)、根瘤菌属(Mesorhizobium thiogangeticum)、奥德赛芽孢杆菌(Bacillus odysseyi)、乳酸杆菌(Lactobacillusoligofermentans)。在永川毛霉型豆豉制曲的前5 d细菌种类较多,鉴定到了魏斯氏菌(Weissella cibaria)、费格森埃希菌(Escherichia fergusonii)、融合魏斯氏菌(Weissella confuse)、变异棒杆菌(Corynebacterium variabile)、奥德赛芽孢杆菌(Bacillus odysseyi)、乳酸杆菌(Lactobacillus oligofermentans)6 种细菌。在制曲后期同时发现有根瘤菌(Mesorhizobium thiogangeticum)的生长,但在进入后发酵阶段消失了。在后发酵阶段,奥德赛芽孢杆菌(Bacillus odysseyi)、乳酸杆菌(Lactobacillus oligofermentans)和乳酸杆菌(Lactobacillus lindneri)是优势菌群。
2.2.3.2 真菌水平变性梯度凝胶电泳图谱分析
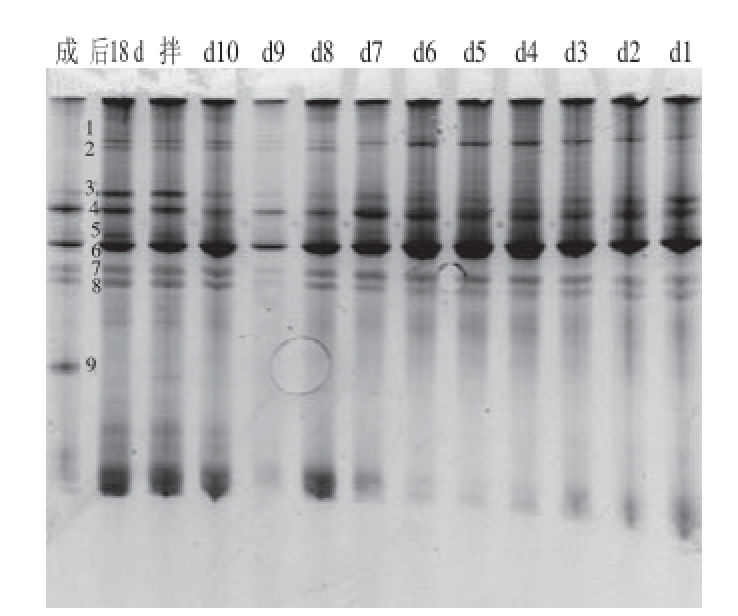
图8 不同豆豉样品中的真菌巢式PCR产物的水平DGGE图谱
Fig.8 Time-travel DGGE profi le of nested-PCR amplifi cation products from fungi in different Douchi samples
如图8所示,永川毛霉型豆豉在发酵过程中的真菌巢式PCR扩增产物共出现了9 条明显条带,分别被编号为1~9。经测序比对分析,分属于不同真菌,见表4。
表4 豆豉在发酵过程中真菌鉴定结果
Table 4 Fungal strains identifi ed during the fermentation of Douchi by DGGE
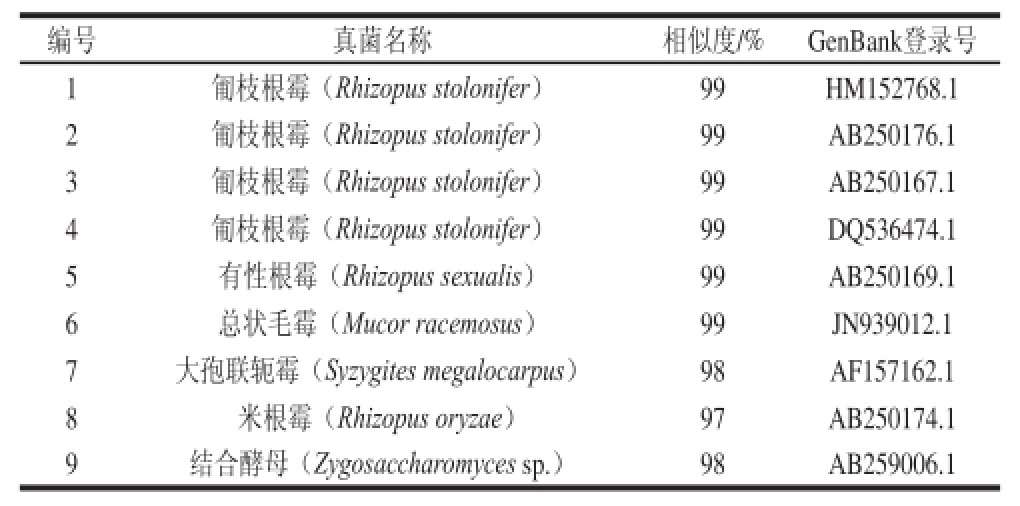
由表4可知,永川毛霉型豆豉发酵过程中,可发现9条明显条带,鉴定出匍枝根霉(Rhizopus stolonifer)、有性根霉(Rhizopus sexualis)、总状毛霉(Mucor racemosus)、大孢联轭霉(Syzygites megalocarpus)、米根霉(Rhizopus oryzae)、结合酵母(Zygosaccharomyces sp.)。在制曲阶段,其霉菌构成没有发生显著变化。总状毛霉是优势真菌,但伴有多种黑根霉,因此在制曲结束阶段会发现黑色孢子沉积在大豆上。米根霉的生长是豆豉在制曲后期糖化酶活性到达最大值的重要原因。虽然采用传统方法没有分离到酵母菌,但在后发酵阶段,DGGE技术检测到结合酵母(Zygosaccharomyces sp.)的存在。
2.2.4 微生物区系聚类分析结果
根据发酵阶段样本,按DGGE条带有无进行聚类分析。
2.2.4.1 细菌聚类分析结果
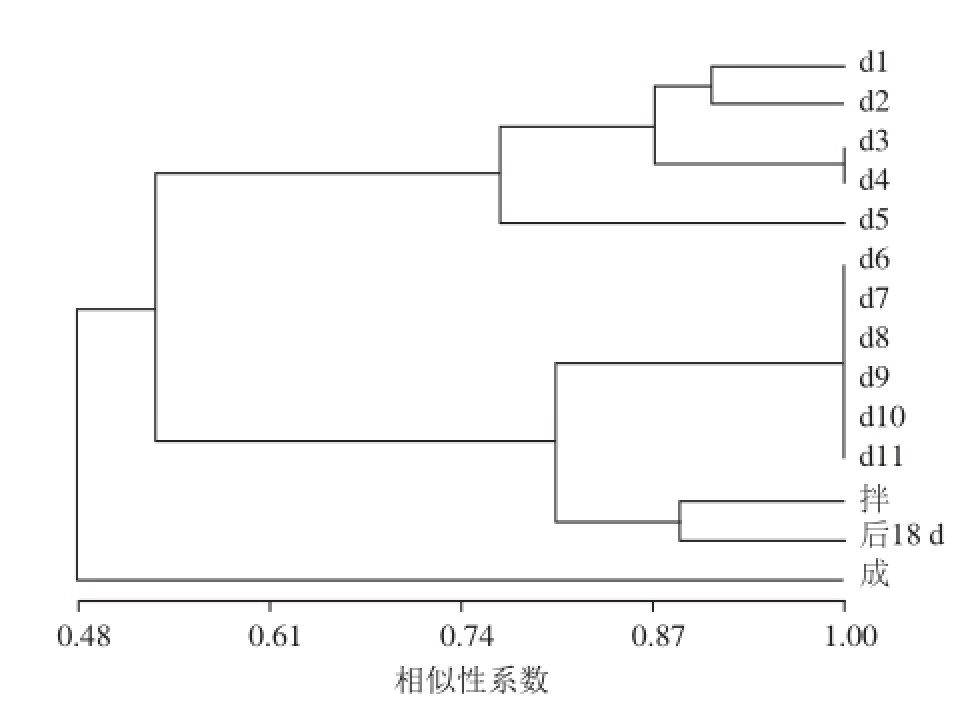
图9 细菌微生物区系聚类分析结果
Fig.9 Clustering analysis of bacterial DGGE profi le
由图9可知,根据不同发酵阶段豆豉细菌引物扩增DGGE谱带将其归为三大类,制曲前5 d归为一类,制曲6~10 d与拌料、后发酵18 d归为一类,成品豆豉单独聚为一类。说明豆豉制曲过程中细菌区系前后变化较大,成品豆豉与制曲细菌区系更是有较大差异。
2.2.4.2 真菌聚类分析结果
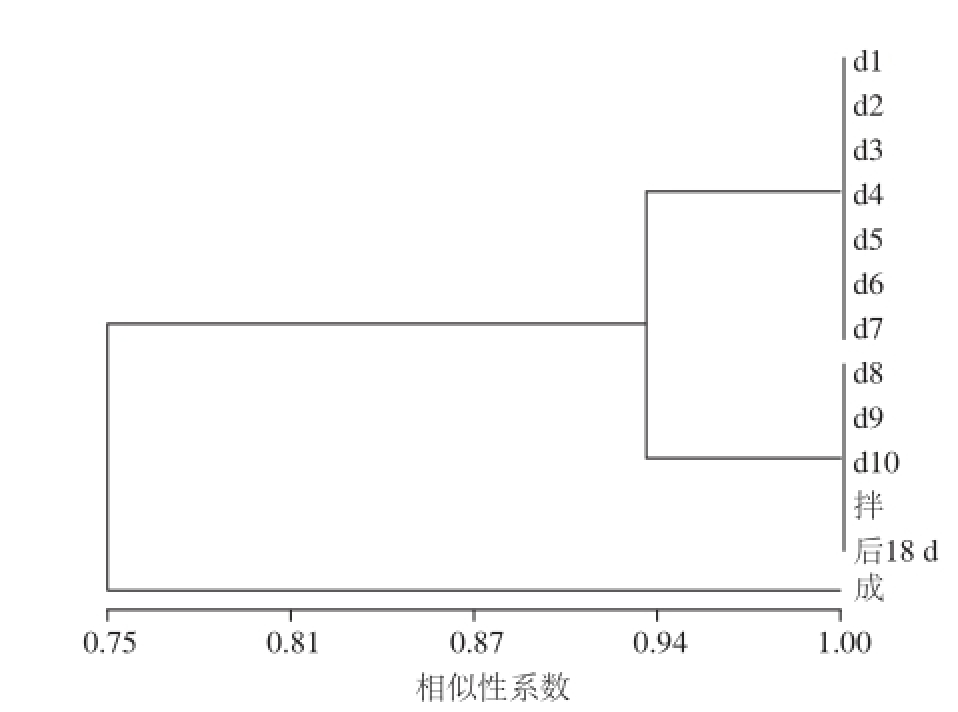
图10 真菌微生物区系聚类分析结果
Fig.10 Clustering analysis of fungal DGGE profi le
由图10可知,永川豆豉制曲过程中真菌微生物区系变化不明显,前发酵过程可以归为两类。制曲1~7 d可以聚为一类,制曲8~10 d以及拌料、后发酵第18天可以聚为一类。成品中真菌微生物区系与制曲阶段有较大差异。
永川毛霉型豆豉在制曲过程中,有细菌的参与。由于是开放制曲,细菌在第4天(S5)进入对数增长期,细菌总数在制曲结束时达到最高峰2.44×10 9CFU/g。这与汪孟娟等 [21]在曲霉型豆豉中的研究结果相近。在永川毛霉豆豉拌入食盐、白酒、醪糟后,由于水分活度降低,微生物生长受到抑制,数量迅速降低。通过PCR-DGGE技术,发现了永川毛霉型豆豉发酵过程中微生物区系的变化,共鉴定到了8 种细菌。在制曲阶段细菌的菌群区系变化较大。在制曲初期,蒸煮后的大豆水分活度高,营养丰富,更易于各种微生物的生长。在制曲的第1~5天,魏斯氏菌(Weissella cibaria)是优势菌群,在第6天时消失。融合魏斯氏菌(Weissella confuse)和Weissella cibaria变化规律一致。在第2~5天可以检测到费格森埃希菌(Escherichia fergusonii)的存在,其在第2天含量最高。在第3~5天可以检测到变异棒杆菌(Corynebacterium variabile),其在第3天含量最高。同时奥德赛芽孢杆菌(Bacillus odysseyi)和乳酸杆菌(Lactobacillus lindneri)一直存在于发酵过程中。魏斯氏菌是乳酸菌的分支,可产乳酸,其蛋白酶为酸性蛋白酶。由于魏斯氏菌在制曲前期的快速增长,永川毛霉型豆豉总酸含量和酸性蛋白酶活性也随之增长,总酸含量的提高对大肠杆菌和变形杆菌有一定的抑制作用。随着魏斯氏菌的消失,总酸的含量和酸性蛋白酶的活性逐渐降低。由于在制曲第6天毛霉进入对数增长期,其大量增殖抑制了魏斯氏菌的增长,同时也抑制了费格森埃希菌和变异杆菌这些具有潜在危害的细菌增长。在制曲第6天以后,检测不到魏斯氏菌和费格森埃希菌以及变异杆菌。这与Chen Tingtao等 [22]研究曲霉型豆豉结果类似。在制曲后期同时发现有根瘤菌(Mesorhizobium thiogangeticum)的生长,但在进入后发酵阶段消失了。在后发酵阶段,奥德赛芽孢杆菌(Bacillus odysseyi)、乳酸杆菌(Lactobacillus oligofermentans)和乳酸杆菌(Lactobacillus lindneri)是优势菌群。芽孢杆菌和乳酸菌可以适应永川毛霉型豆豉后发酵过程的高盐缺氧环境,可以产生蛋白酶、淀粉酶和脂肪酶等多种酶,在后发酵过程中对豆豉品质形成发挥了重要作用。在细菌型豆豉和韩国大酱的品质形成中,这两种菌种也发挥了重要作用 [4,23]。
永川毛霉型豆豉中,细菌主要是在后发酵阶段发挥作用,对其品质形成主要有以下几方面贡献:第一,在后发酵阶段乳酸菌产酸,提高了永川豆豉的总酸含量,抑制了其他微生物的增长,并使永川毛霉型豆豉具备了微酸的滋味特征;第二,乳酸菌和芽孢杆菌在后发酵过程中分泌的蛋白酶、淀粉酶和脂肪酶等多种酶与制曲阶段毛霉产生的相关酶类一起作用于永川毛霉型豆豉。虽然后发酵阶段酶活性低,但作用时间长。在这个过程中豆豉中蛋白、淀粉、脂肪等成分长链断裂水解,形成了其入口化渣的质构特点,同时氨基酸与还原糖发生的美拉德反应生成的类黑精决定了永川毛霉型豆豉的黝黑色泽,蛋白质和脂肪的代谢产物生成的风味物质决定了其风味品质。
在制曲阶段,真菌是主要发酵菌种。永川毛霉型豆豉真菌菌落总数在第6天快速增长,并在制曲结束到达最大值1.760×10 9CFU/g。真菌菌落总数在拌料后由于高盐厌氧环境以及酒精的作用下迅速降低。真菌菌落总数在后发酵过程第75天出现一个生长高峰,不过随着大量次生代谢产物的增加和酸度的提高而逐渐下降。在制曲阶段,永川毛霉型豆豉真菌区系构成没有发生显著变化。总状毛霉(Mucor racemosus)是优势真菌。永川毛霉型豆豉中性蛋白酶和碱性蛋白酶活力变化与真菌菌落总数变化一致。总状毛霉的数量与中性蛋白酶、碱性蛋白酶和纤维素酶的活力密切相关,关系到制曲是否成功。同时在制曲阶段也发现了另外4 株真菌:匍枝根霉(Rhizopus stolonifer)、有性根霉(Rhizopus sexualis)、大孢联轭霉(Syzygites megalocarpus)以及米根霉(Rhizopus oryzae)。匍枝根霉、有性根霉和米根霉具有分泌糖化酶的能力,对于豆豉中多糖的糖化发挥了重要的作用,生成的还原糖有利于微生物利用以及美拉德反应的进行。同时根霉具有分泌β-葡萄糖苷酶的活性 [24],对于大豆异黄酮由糖苷型向苷元型的转化具有重要意义。在对大豆异黄酮构成的分析中也证实异黄酮的转化主要发生在制曲阶段。但如果匍枝根霉过多会引起制曲中豆豉变黑,影响制曲效果。在后发酵阶段发现了结合酵母(Zygosaccharomyces sp.),结合酵母在纳豆、味增和曲霉型豆豉的后发酵中都有发现,它可以分泌多种酶类,有利于蛋白质、脂肪等降解,为大豆发酵食品的风味形成有重要贡献 [23]。
毛霉等霉菌在制曲期间所产生的蛋白酶、纤维素酶等酶不但在制曲期间发挥作用,而且在后发酵期间也发挥作用 [25-26],如果制曲期间真菌生长不够旺盛,会影响后发酵时间和产品质量。真菌在永川毛霉型豆豉发酵过程中有以下几方面作用:第一,毛霉是制曲过程中的主要微生物,是蛋白酶和纤维素酶等酶的主要来源。第二,根霉分泌的淀粉酶、糖化酶对于大豆中淀粉转化成还原糖具有重要意义,还原糖的产生有利于微生物发酵,同时对豆豉的色泽和回甘滋味特征形成具有重要意义。第三,根霉具有分泌β-葡萄糖苷酶的能力,使大豆中不具备生物活性的糖苷型异黄酮转化成为具备生物活性的苷元型异黄酮,使永川毛霉型豆豉具备更高的保健功能。
永川毛霉型豆豉在制曲过程中的真菌主要以总状毛霉为主,辅以米根霉、大孢联轭霉、有性根霉、匍枝根霉,这些霉菌在生长过程中分泌了高活力的蛋白酶、脂肪酶、纤维素酶、半纤维素酶、糖化酶等,为后发酵储备了多种酶系。在后发酵阶段,发挥作用的微生物主要有耐盐厌氧的芽孢杆菌、乳酸菌、结合酵母。在这些微生物生成多种酶系的作用下蛋白、脂肪、淀粉等发生降解,形成了永川毛霉型豆豉的品质特征。
永川毛霉型豆豉在制曲过程中霉菌和细菌增长规律一致,制曲前期增长缓慢,后期呈对数增长,并在制曲结束时菌落总数最高。拌料进入后发酵阶段,菌落总数快速下降,并保持较低水平。在制曲前期有多种乳酸菌生长,后期乳酸菌受到霉菌增长的抑制,种类减少。在后发酵阶段,奥德赛芽孢杆菌(Bacillus odysseyi)、乳酸杆菌(Lactobacillus oligofermentans)和乳酸杆菌(Lactobacillus lindneri)是优势菌群。同时在制曲初期也发现了费格森埃希菌(Escherichia fergusonii)等杂菌生长。永川毛霉型豆豉制曲阶段优势霉菌是总状毛霉(Mucor racemosus),同时伴有有性根霉(Rhizopus sexualis)、匍枝根霉(Rhizopus stolonifer)、大孢联轭霉(Syzygites megalocarpus)、米根霉(Rhizopus oryzae)的生长,后发酵阶段有结合酵母(Zygosaccharomyces sp.)的参与。
参考文献:
[1] HOLZAPFEL W H. Appropriate starter culture technologies for smallscale fermentation in developing countries[J]. International Journal of Food Microbiology, 2002, 75(3): 197-212.
[2] 孙森, 宋俊梅, 曲静然. 豆豉后发酵过程中微生物菌相的变化[J]. 中国食品添加剂, 2008, 18(2): 139-143.
[3] VALYASEVI R, ROLLE R S. An overview of small-scale food fermentation technologies in developing countries with special reference to Thailand: scope for their improvement[J]. International Journal of Food Microbiology, 2002, 75(3): 231-239.
[4] KIM T, LEE J, KIM S, et al. Analysis of microbial communities in doenjang, a Korean fermented soybean paste, using nested PCR-denaturing gradient gel electrophoresis[J]. International Journal of Food Microbiology, 2009, 131(2/3): 265-271.
[5] JEYARAM K, MOHENDRO SINGH W, PREMARANI T, et al. Molecular identification of dominant microflora associated with ‘Hawaijar’: a traditional fermented soybean (Glycine max (L.)) food of Manipur, India[J]. International Journal of Food Microbiology, 2008, 122(3): 259-268.
[6] 庞庆芳, 张炳文. 中国传统大豆发酵食品: 豆豉功能成分的研究进展[J]. 食品研究与开发, 2006, 27(2): 185-198.
[7] 钱家亮, 宋俊梅. 豆豉天然制曲过程的动态研究[J]. 食品与发酵工业, 2008, 34(2): 58-60.
[8] 蒋立文, 夏波. 浏阳豆豉发酵微生物的初步研究[J]. 中国酿造, 2004, 23(12): 11-12; 16.
[9] 张建华. 曲霉型豆豉发酵机理及其功能性的研究[D].北京: 中国农业大学, 2003: 14-24.
[10] CHEN Tingtao, XIONG Shunqiang, JIANG Shuying, et al. Molecular identifi cation of microbial community in Chinese douchi during postfermentation process[J]. Food Science and Biotechnology, 2011, 20(6): 1633-1638.
[11] PORCELLATO D, GRONNEVIK H, RUDI K, et al. Rapid lactic acid bacteria identifi cation in dairy products by high-resolution melt analysis of DGGE bands[J]. Letters in Applied Microbiology, 2012, 55(4): 341-351.
[12] THANH V N, MAI L T, TUAN D A. Microbial diversity of traditional Vietnamese alcohol fermentation starters (banh men) as determined by PCR-mediated DGGE[J]. International Journal of Food Microbiology, 2008, 128(2): 268-273.
[13] 中华人民共和国卫生部. GB 4789.2-2010 食品安全国家标准食品微生物学检验菌落总数测定[S]. 北京: 中国标准出版社, 2010: 1-5.
[14] 中华人民共和国国家卫生部. GB 4789.15-2010 食品安全国家标准食品微生物学检验霉菌和酵母计数[S]. 北京: 中国标准出版社, 2010: 1-5.
[15] MUYZER G, de WAAL E C, UITTERLINDEN A G. Profiling of complex microbial populations by denaturing gradient gel electrophoresis analysis of polymerase chain reaction-amplifi ed genes coding for 16S rRNA[J]. Applied and Environmental Microbiology, 1993, 59(3): 695-700.
[16] VAINIO E J, HANTULA J. Direct analysis of wood-inhabiting fungi using denaturing gradient gel electrophoresis of amplifi ed ribosomal DNA[J]. Mycological Research, 2000, 104(8): 927-936.
[17] FERRIS M J, MUYZER G, WARD D M. Denaturing gradient gel electrophoresis profi les of 16S rRNA-defi ned populations inhabiting a hot spring microbial mat community[J]. Applied and Environmental Microbiology, 1996, 62(2): 340-346.
[18] 朱扬玲. 采用PCR-DGGE方法研究浙江玫瑰醋酿造过程中的微生物多样性[D]. 杭州: 浙江工商大学, 2009.
[19] 汪孟娟, 陈廷涛, 姜淑英, 等. 豆豉发酵中的微生物和功能性组分研究动态[J]. 中国微生态学杂志, 2010, 22(1): 81-84.
[20] 张海德, 张永华. 酱油中的生理活性物质[J]. 食品科学, 1999, 20(1): 7-9.
[21] 汪孟娟, 熊顺强, 陈廷涛, 等. PCR-DGGE监测豆豉制曲过程中菌群的动态变化[J]. 南昌大学学报: 理科版, 2010, 34(6): 571-574.
[22] CHEN Tingtao, WANG Mengjuan, JIANG Shuying, et al. Investigation of the microbial changes during koji-making process of Douchi by culture-dependent techniques and PCR-DGGE[J]. International Journal of Food Science and Technology, 2011, 46(9): 1878-1883.
[23] KIM T, LEE J, PARK M, et al. Analysis of bacterial and fungal communities in Japanese- and Chinese-fermented soybean pastes using nested PCR-DGGE[J]. Current Microbiology, 2010, 60(5): 315-320.
[24] 吴定, 江汉湖. 高蛋白发酵食品丹贝研究进展[J]. 食品与发酵工业, 1994, 19(3): 72-74.
[25] 索化夷, 骞宇, 阚建全. 传统发酵永川毛霉型豆豉蛋白质提取方法比较与降解规律研究[J]. 食品科学, 2013, 34(23): 180-183. doi: 10.7506/spkx1002-6630-201323038.
[26] 索化夷, 卢露, 吴佳敏, 等. 永川豆豉在传统发酵过程中基本成分及蛋白酶活性变化[J]. 食品科学, 2011, 32(1): 177-180.
Changes in Microbial Load and Flora during Fermentation Yongchuan Mucor-Type Douchi
SUO Huayi
1,2, ZHAO Xin
3, QIAN Yu
3, CHEN Juan
4, LI Jian
4, ZHANG Yu
1,2, KAN Jianquan
1,2,*
(1. College of Food S cience, Southwest University, Chongqing 400715, China; 2. Chongqing Engineering Research Center of Regional Food, Chongqing 400715, China; 3. School of Biological and Chemical Engineering, Chongqing University of Education, Chongqing 400067, China; 4. Institute of Qinghai-Tibetan Plateau, Southwest University for Nationalities, Chengdu 610041, China)
Abstract:The traditional Yongchuan Douchi has a unique flavor and is always greatly loved by consumers. Its unique flavor is produced by interaction of the complex microbial flora. Nested polymerase chain reaction (Nested-PCR) and denaturing gel gradient electrophoresis (DGGE) were adopted to analyze the microfl ora ecological evolution of Yongchuan Douchi during fermentation and it was found that in the koji-making process, the amounts of molds and bacteria exhibited a logarithmic growth trend and the total number of colonies rapidly declined during the late stage of fermentation and then remained stable at a lower level. A variety of lactic acid bacteria increased during the early stage of koji-making and the number of species of lactic acid bacteria decreased during the late stage due to the growth inhibition by molds. At the late stage of fermentation, Bacillus odysseyi, Lactobacillus oligofermentans and Lactobacillus lindneri were the dominant bacteria. Besides, it was also found that infectious microbes such as Escherichia fergusonii grew at the beginning of kojimaking. The dominant mould of Yongchuan Douchi during the entire koji-making period was always Mucor racemosus, which was accompanied by the growth of Rhizopus sexualis, Rhizopus stolonifer, Syzygites megalocarpus, and Rhizopus oryzae as well as Zygosaccharomyces sp. during the late phase of fermentation.
Key words:Yongchuan Douchi; microflora; nested-polymerase chain reaction (PCR); denaturing gel gradient electrophoresis (DGGE)
中图分类号:TS214.2
文献标志码:A
文章编号:1002-6630(2015)19-0124-08
doi:10.7506/spkx1002-6630-201519022
收稿日期:2014-12-18
基金项目:国家自然科学基金青年科学基金项目(31201411)
作者简介:索化夷(1978-),男,副教授,博士,研究方向为发酵微生物。E-mail:birget@swu.edu.cn
*通信作者:阚健全(1965-),男,教授,博士,研究方向为食品科学。E-mail:ganjq1965@163.com